Agaricostilbomycetes
zum Glossar mit Abbildungsverweisen über:

Agaricostilbomycetes, Stielköpfchenpilze
1 Mit Hilfe des Kerns
.
Wie teilt man etwas, was als Zwilling geboren,
Ohne der Mikrotubuli[1] Kraft?
Mit Aktinfilamenten[2] vielleicht,
Falls dort eine Rolle sie überhaupt spielen!
Was ihnen in Ruhe Nähe und Unterhalt schafft, gewährt
Unterstützung[3],
Nimmt den einen, lässt den andern auf Wanderschaft geh‘n.
.
So öffnet ein kleines Fenster der Kern[4],
Lässt den einen Zwilling, der dem andern noch bändchenverbunden[5],
In sein Nucleoplasma[6] mitsamt dem einenden Stück,
Und schickt den zweiten dem ersten als Partner außen entlang.
.
Genau gegenüber dem Ort, an dem er den Zwilling verloren,
Öffnet erneut sich ein Fenster, dem Ankömmling Einlass zu bieten:
So darf er, genau wie sein Partner,
Platz im Inneren nehmen.
.
Mikrotubuli, zwischen den beiden gespannt[7],
Heften Chromosomen sich an,
Sterntubuli[8], nach außen entsandt,
Vertäuen Spindelpolkörper in der Umgebung des Kerns. –
.
Nur einfache Poren besitzen die Septen[9],
Nichts, was auffällt, begleitet die Pforten[10],
Kein Microbody[11], noch irgendein Spezialorganell.
Erweist sich der Agaricostilbomyceten Lebensart.
Freilich, der Arten Eigenheiten genau betrachtet,
Lässt mehr als erstaunt den Forscher zurück!
.
Fußnoten
[1] Mikrotubuli: Röhrenförmige Proteinkomplexe innerhalb eukaryotischer Zellen und in Geißeln; Hohlröhren aufgebaut aus den Dimeren α- und β-Tubulinen; funktionieren bei vielen wesentlichen zellulären Prozessen, einschließlich Mitose und Meiose. Mikrotubuli sind gerichtete Strukturen, deren Enden wegen ihrer Polymerisationsrichtung mit plus und minus bezeichnet werden; das α-Tubulin-Ende wird minus-Ende genannt, das β-Tubulin plus-Ende; bilden die Grundlage für das Cytoskelett und spielen eine wichtige Rolle in der Ausbildung der Kernteilungsspindel und im Vesikeltransport
[2] Actin, Fädiges Actin: Actin ist ein häufiger Bestandteil des Cytoskeletts und kommt besonders in Muskelzellen vor; zu Fäden polymerisiert (F-Actin), dient es der Stabilisierung der äußeren Zellform sowie der Ausbildung von Zellfortsätzen, intrazellulären Verlagerungen und gerichteten intrazellulären Bewegungen
[3] Beim Teilen des Spindelpolkörpers, SPB
[4] Zellkern
[5] Spindelpolkörper (Basidiomycota): Liegt während der Interphase in Zwillingstruktur vor, wobei die beiden Teile mit einem Mittelstück („Bändchen“) verbunden sind; im Zuge der Kernteilung separieren sich die beiden Teile, wandern zu den Kernpolen und wirken als MTOCs; nach der Kernteilung wird jeweils der Zwillingsteil de-novo gebildet, so dass wieder eine Zwillingsstruktur vorliegt
[6] Nucleoplasma, Karyoplasma: Cytoplasma des Zellkerns; gelartige Flüssigkeit, die vom Cytoplasma der Zelle durch die Kernhülle abgegrenzt wird; es suspendiert den Kerninhalt wie Chromosomen und Nucleolus und bildet das Medium für Chromosomenteilung und -wanderung.
[7] Polare Mikrotubuli: gehen von den MTOCs Richtung Chromosomen
[8] Astrale Mikrotubuli: gehen von den MTOCs Richtung Cytoplasma
[9] Septum (Algen, Pilze): Querwand eines einzellreihigen Fadens, eines Trichoms, eines Zellausläufers, einer Hyphe
[10] Hier sind die Poren gemeint
[11] Microbodies: Gruppe von Zellorganellen mit einfacher Lipidmembran, in deren enzymreichen Reaktionsräumen, vom Cytoplasma abgetrennt, Stoffwechselprozesse ablaufen; in ihnen werden verschiedene Subtypen zusammengefasst: Peroxisomen, Glyoxisomen und Glykosomen
[12] Dimorph: Sind Organismen treten sie in zwei verschiedenen vegetativen Erscheinungsformen auf
[13] Hefen i.w.S.: Von Fungi (Echten Pilzen) durch Knospung gebildete Einzelzellen unterschiedlichster Form; Knospungsstellen sind als Narben in der Zellwand erkennbar; im weiten Sinne können sie von Ascomycota (Schlauchpilzen) wie von Basidiomycota (Ständerpilzen) gebildet werden; als Hefen in engerem Sinne werden jene der Ascomycota bezeichnet
[14] Hefen-Hyphen-Dimorphismus: Besteht, treten Pilze sowohl in Hefen- als auch in Hyphenform auf
Eingestellt am 24. Oktober 2026
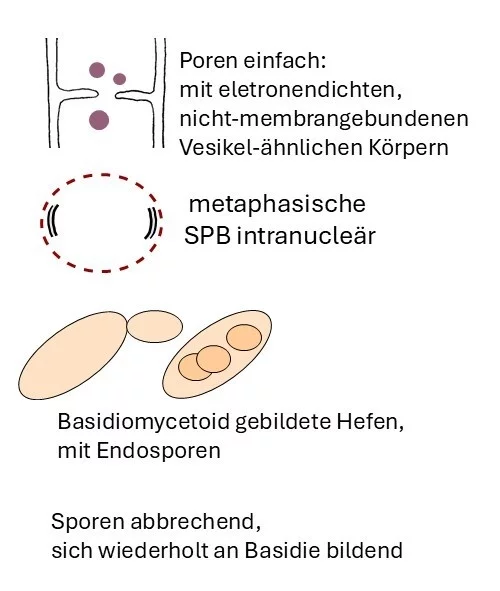
Merkmale der Agaricostilbomycetes
Erklärung im Text
Eingestellt am 24. Oktober 2026
.

Agaricostilbomycetes, Stielköpfchenpilze
2 Spielwiese der Evolution
.
Bieten der Evolution Ziele in doppelter Sicht:
Jeder Phase Umweltbeziehung, ihre Reaktionen darauf,
Werden oft optimiert in iterativem[4] Prozess.
.
Hefen wohl lernten als Erste das Springen[5],
– Nicht sie selbst, ihre Tochterzellen katapultieren sie weg –
Ist mancher Forscher fest überzeugt:
Sie kamen zuerst auf den Dreh,
Tochterzellen mit einem Schuss
In Freiheit zu setzen als Ball für den Wind.
.
So wurde der Springmechanismus
Zuerst im Zuge asexueller Vermehrung[6] errichtet,
Bevor diese Methode, Basidien aufgesetzt,
Der Ständerpilze[7] besondere Zukunft gebar.
.
Meiosporangien[8] blieb der Springmechanismus dann länger erhalten,
Zu ihrem Nachteil aber mit fehlender Sporenbildungskapazität an ein und demselben Ort,
Wie sie für Schleuder-Basidiomycoten[9] so üblich.
Freigestellt war und ist Agaricostilbomycetes die Sporenbildungsposition:
.
Vier oder mehr kürzere Beulen entstehen an der Basidie Kopf
– Sie selbst agiert als einzelne Zelle –
Für Sporen in Reih und Glied hintereinander geformt,
Bis die Reserven für neue Mitosen[10] nicht mehr genügen.
Oder sie leben als vierzellige Sporenmütter, der Quere geteilt[11]
Mit je einer weit oben liegenden Stelle
Für der gereihten Sprösslinge Schar.
Beides blieb bis heute erhalten – was früher wohl war? –.
.
Und, erstaunlich, als wären sie über Ahnen
Immer noch den Ascomycoten[12]-Brüdern verbunden,
Legen seltsamerweise einiger Arten Hefezellen Sporen im Inneren an,
Um doppelstrategisch sich zu vermehren damit.
.
Fußnoten
[1] Biphasischer Lebenskreislauf (Fungi): Bezeichnet einen Entwicklungszyklus, der aus zwei deutlich voneinander abgegrenzten, aufeinanderfolgenden Phasen besteht, z. B. abweichend gestaltete Morphologie, wie Hefe/Hyphe und/oder saprotroph/parasitisch
[2] Basidiomycetoide Hefenbildung: Enteroblastische Hefenbildung, wobei nur die inneren Zellwandschichten der bildenden Zelle zur Bildung der neuen Zellwand herangezogen werden
[3] Hefen-Hyphen-Dimorphismus: Besteht, treten Pilze sowohl in Hefen- als auch in Hyphenform auf
[4] Iterativ: wiederholend, schrittweise nähernd
[5] Springhefen: Hefen, die ein Sterigma bilden und an ihm Sporen abschleudern
[6] Asexuelle Vermehrung: Rein mitotisch bedingte Vermehrung, daher Individuen genetisch identisch
[7] Basidiomycota: Ständerpilze (Dikarya – Unbegeißelte Chitinpilze – Fungi – Opisthokonta – Eukarya)
[8] Meiosporangium: Eine sporenbildende Zelle, gelegentlich im Zuge der Sporenbildung geteilt (Basidiomycota), in der Karyogamie (K!) und Meiose (R!), also Verschmelzung haploider Kerne und anschließend den doppelten Chromosomensatz reduzierende Kernteilungen erfolgen und danach Meiosporen entstehen
[9] Ständerpilze mit aktivem Sporenabschuss
[10] Mitose, mitotisch: Im Kern mittig in einer Ebene versammelte Chromosomen bildeten je zwei identische Chromatiden, die bei der Mitose durch Mikrotubuli separiert werden und, von einer Zellwand getrennt, als identische Chromosomensätze der entstandenen Zellen wirken; abgekürzt M!
[11] Querseptierte Basidien
[12] Ascomycota: Schlauchpilze (Dikarya – Unbegeißelte Chitinpilze – Fungi – Opisthokonta – Eukarya)
Eingestellt am 24. Oktober 2026
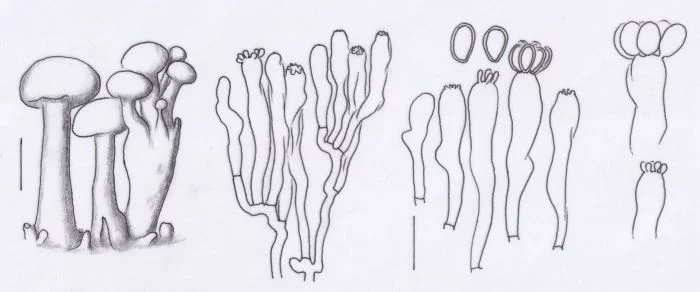
Chionosphaera apobasidialis
Links: Gruppe von Fruchtkörpern. - Mitte links: Basidienkandelaber; Holobasidien mit Sporenanlagen. – Mitte rechts: Einzelbasidien in unterschiedlichen Entwicklungsstadien, Basidie mit apikalem Kranz reifer, dickwandiger Sporen; einzelne Sporen. – Rechts: Basidien mit Sporenanlagen und mit noch dünnwandigen Sporen.
Skala für Habitus: 0,5 mm; für mikroskopische Zeichnungen: 10 µm
Nach Oberwinkler & Bandoni (1982), Abb. 40, 45, 46, 47
Eingestellt am 24. Oktober 2026
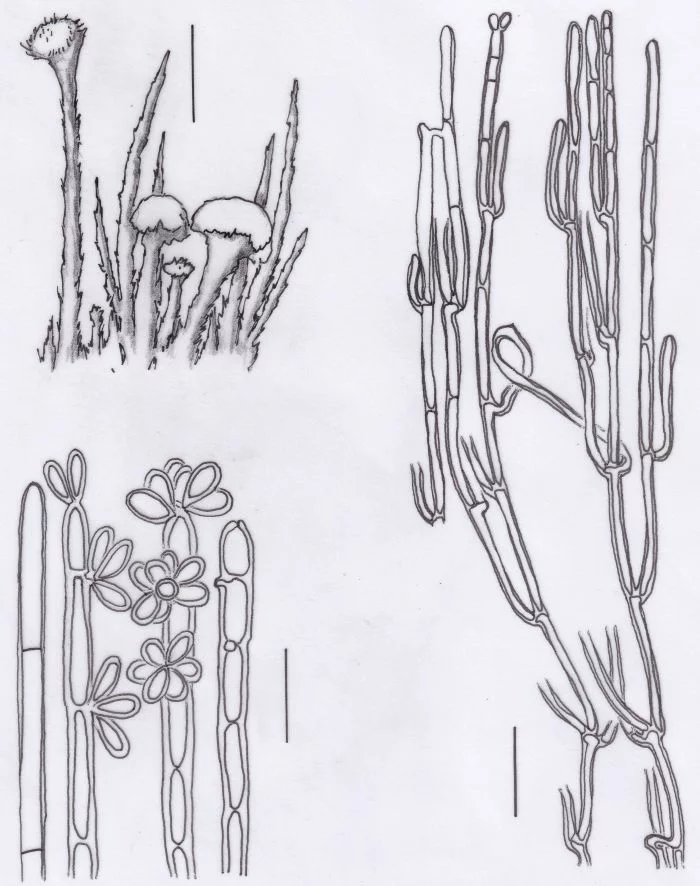
Agaricostilbum palmicola
Links oben: Gruppe von Fruchtkörpern, mit sterilen, zugespitzten, gezähnten, aus Hyphen bestehenden sterilen Formen. – Rechts: Ausschnitt aus Randbereich des Hymeniums. – Links unten: Querseptierte Basidien in unterschiedlichen Entwicklungsstadien; Sporengruppen an oberen Enden der Basidienzellen.
Skala für Habitus: 0,5 mm; für mikroskopische Zeichnungen: Links unten: 10 µm; rechts 20 µm
Nach Oberwinkler & Bandoni (1982)
Eingestellt am 24. Oktober 2026
.
Agaricostilbomycetes, Stielköpfchenpilze
3 In Tiefen verborgen
.
Ein hauchzartes Pilzchen, verborgen zwischen Bröseln von Lehm,
Nur wenig Organik dazwischen als Nahrung für Hyphen,
– Ein bis drei tausendstel Millimeter[1] nur dünn –
Bodenpartikeln, auf Nährsubstraten platziert, entwachsen,
Vor gut einem Dutzend von Jahren als Cystobasidiopsis[2] beschrieben,
Löst vielleicht ein Rätsel der Basidiomykologie[3].
.
Wie oft schon wurde vergeblich die Frage gestellt
Nach Evolution und Bedeutung von Schnallen[4]
Fand sich jedoch immer wieder vor dem Problem:
Den einen Pilzen sind Schnallen sehr wichtig, den anderen völlig egal!
.
Aus Platzgründen, so die übliche Meinung,
Müsste, das Dikaryon[5] gemeinsam zu teilen,
Ein kurzer seitlicher Auswuchs entsteh‘n,
Der einem der Tochterkerne Raum verschafft
Ihn mit Septum vom Schwesterkern anschließend trennt,
Bevor der Auswuchs, weiter rückwärts sich wendend,
Sich mit der subterminalen Zelle[6] vereint, um
Dort einem anderen Kern der Teilung Partner zu sein.
.
Doch weit gefehlt!
Denn dünnste Hyphen teilen auch ohne Schnallen die Kerne des Dikaryons synchron
Und dicke Hyphen mit übermäßigem, internem Raum verwenden Schnallen dazu;
Dünne mit und dickere ohne Schnallen erschweren weiter die Interpretation. –
.
In Tiefen verborgen, irgendwo im Genom,
Als die Ahnen mit Gametangien[7] noch lebten,
Und doch sich bald mit Somatogamie[8] nur vereinten,
Liegen gewisse Pläne, für den, der will, noch immer bereit.
.
Cystobasidiopsis greift wohl auf Genombibliotheken zurück,
Um in der Ahnen Erbe zu schwelgen,
Treibt zwar dikaryotische, schnallenlose Hyphen voran,
Formt Gametangien aber an einigen Spitzen:
.
Zur kleinen Kugel bläht sich das Ende.
– Gleich darunter wächst ein kürzerer Zweig hervor, an sie heran. –
Das Dikaryon unter den beiden teilt sich synchron, es gehört ja zusammen;
Je ein Tochterkern bleibt dann zurück,
Der andere wandert ins Blähgametangium
Beziehungsweise in das kurze seitliche Stück.
.
Schon nach der Kerne Teilung
Trennen Septen die Einkernbehälter von ihren Hyphen,
Einkerniger Ast und einkernige Kugel vereinen sich in Gänze zur Zygote[9] darauf,
Mit einem Knick, der Septen wegen, am Grund.
.
Als diploide Zygote ruht sie nur wenig;
Treibt einen dickeren Schlauch, die Basidie[10], hervor.
Vier Räume trennen vier haploide Kerne:
Sie wandern mitsamt Protoplasma[11] seitlich in die Sporen hinaus.
.
Was oft in Form, Farbe und Dicke der Wand
Als Einheit vor der Basidie Entwicklung sich zeigt,
Stellt nichts als die Zygote dar,
Wartend bis ihre Keimung erfolgt.
Sie selbst bereitet mit Karyogamie[14] sich vor
Und Sporen mit je einem Kern bedenkt.SL –
.
Und dennoch, auch wenn seine Gametangiogamie[17]
An Schnallenbildung erinnert, verführt
Dies zur Annahme, beide seien als homolog[18] zu betrachten,
Doch besteht ein Einwand dabei, der zu bedenken bleibt:
Der männliche Auswuchs der Gametangiogamie von Cystobasidiopsis
Richtet sich nach vorn und nicht wie der Schnallenbogen zurück.
.
Fußnoten
[1] µm
[2] Cystobasidiopsis nierenbergiae (Agaricostilbales; nicht separat behandelt; Agaricostilbomycetes – Der Moderne Rest – Pucciniomycotina – Basidiomycota – …)
[3] Basidiomykologie: Wissenschaft, die sich mit Basidiomycota befasst
[4] Schnallen: Formen sich bei vielen Agaricomycotina im Zuge der Zellteilung einer Hyphe. Seitlich wächst ein etwas einwärts gekrümmter Auswuchs nach hinten, findet Kontakt zu einer darunterliegenden Stelle der Hyphe; gleichzeitig teilen sich zwei Kerne (ein Dikaryon) synchron mitotisch, wobei sich die Tochterkerne eines der beiden Kerne in der ursprünglichen Hyphe nach unten, beziehungsweise nach oben separieren. Eine Tochter des zweiten Kerns begibt sich in den gekrümmten Auswuchs, der andere wandert in der Hyphe nach oben und bildet mit dem zweiten wieder ein Dikaryon. Zwei Querwände werden nun eingezogen: Eine Querwand trennt den Auswuchs von seinem Ursprung, die zweite bildet sich nahe oberhalb des Auswuchses quer in der Hyphe. Diese zweite trennt das Dikaryon im oberen Teil der Hyphe von der Partie darunter, die momentan nur einen Kern besitzt. Um wieder ein Dikaryon bilden zu können, bildet der Auswuchs mit seiner Berührungsstelle an der Hyphe eine Anastomose, lässt seinen Kern zum wartenden wandern, womit auch hier wieder ein Dikaryon etabliert ist. An der Stelle des Auswuchses entsteht eine Verdickung, die als Schnalle bezeichnet wird, geht sie doch auf den rückwärts gerichteten Auswuchs zurück, der wie der Dorn einer Gürtelschnalle aussieht
[5] Dikaryon, dikaryotisch: Zwei konträrgeschlechtliche haploide (n) Kerne [werden als (+)- und (–)-Kerne oder als α- und β-Kerne bezeichnet; unterscheiden sich ihre Behälter in Größe oder die Dikaryen bildenden Kerne in der Wanderungsrichtung, kann auch von männlichen (wandern zu ihren Partnern, die stationär bleiben) und weiblichen Kernen gesprochen werden], bilden funktionell eine Einheit (n+n), ohne miteinander zum diploiden Kern (2n) verschmolzen (K!) zu sein; sie teilen sich mitotisch synchron, um damit zwei Dikaryen zu bilden, sich zu verdoppeln. Im Entwicklungskreislauf erfolgt zwar zunächst die Plasmogamie (P!), doch die Karyogamie (K!) zum diploiden (2n) Kern wird erst kurz vor der Meiose (R!) vollzogen. Man spricht hier auch von verzögerter Karyogamie. Dikaryen treten bei Taphrinomycotina, Pezizomycotina, Pucciniomycotina, Ustilaginomycotina und Agaricomycotina auf.
[6] Subterminale Zelle: Zelle unterhalb der terminalen, der entferntesten, unterhalb der apikalen Zelle
[7] Gametangien: Behälter für Gameten; oder für Zellkerne, die, ohne Gameten zu bilden, dazu bestimmt sind, früher oder später über Karyogamie der sexuellen Fortpflanzung zu dienen
[8] Somatogamie (Basidiomycota): Gewöhnliche Körperzellen, keine besonders gestalteten Zellen, keine Gametangien, verschmelzen, um zwei zueinander passende, kompatible Kerne für sexuelle Fortpflanzung zusammenzubringen
[9] Zygote: Diploide Zelle, die nach der Verschmelzung zweier haploider Kerne, im Zuge der sexuellen Fortpflanzung entstand
[10] Basidien: Ständer, auf denen sexuell gebildete Sporen entstehen
[11] Protoplast, Protoplasma: Gesamter Inhalt einer Zelle (ohne Saftvakuole)
[12] Probasidie: Eine der eigentlichen Basidie vorausgehende, vorwiegend rundlich-ellipsoide Struktur, in der die Karyogamie erfolgt und so als Teil der Basidie gelten kann und als solche noch an der reifen Basidie erkennbar bleibt
[13] Basidie
[14] Karyogamie: Verschmelzung zweier haploider Zellkerne; abgekürzt K!
[15] Meiose, meiotisch: Meiose dient der Reduktion eines diploiden Chromosomensatzes zu haploiden Sätzen. Dabei werden einander entsprechende Chromosomen, im Kern sich dann mittig in einer Ebene gegenüberstehend, gepaart und anschließend in entgegengesetzter Richtung („polwärts“) separiert. Dieser Vorgang wird auch als Reduktionsteilung (oft abgekürzt als R! und zugleich stellvertretend für die ganze Meiose verwendet) bezeichnet. Da die voneinander getrennten haploiden Chromosomen schon zu Chromatiden verdoppelt sind, schließt sich an die Reduktionsteilung noch eine mitotische Teilung an, so dass vier haploide Kerne letztlich vorliegen; abgekürzt mit R!
[16] Keimsporangium: Sporangium, das sich aus einer Zelle heraus (meist Zygote) bildet
SL Bauer R, Metzler B, Begerow D, Oberwinkler F (2009) Cystobasidiopsis nierenbergiae, a new Agaricostilbomycete (Pucciniomycotina). Mycol Res 113(9): 960-066
[17] Gametangiogamie: Für sexuelle Fortpflanzung verschmelzende Gametangien
[18] Homolog: sind Organe oder Erbanlagen, die einen gemeinsamen evolutionären Ursprung (Abstammung von einem gemeinsamen Vorfahren) aufweisen
Eingestellt am 24. Oktober 2026
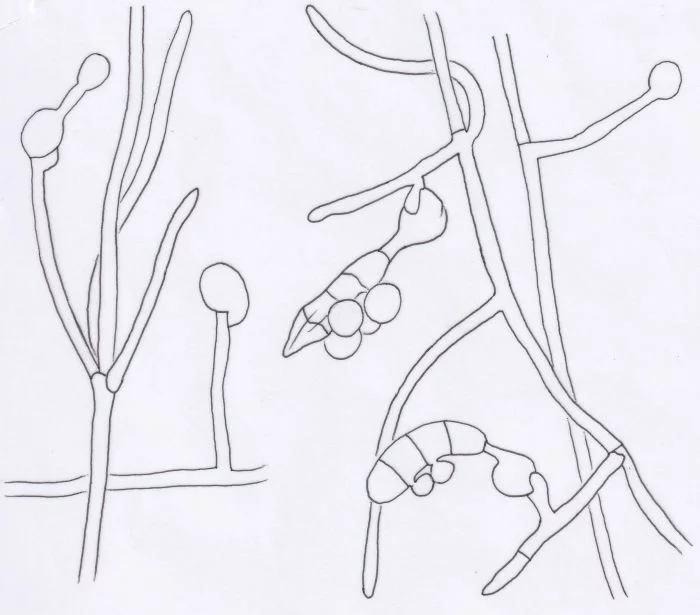
Cystobasidiopsis nierenbergiae
Links: Schnallenlose Hyphen tragen an einem Ende eine mit basaler Schnalle versehene Probasidie, die mit einem kleinen Stiel kopfig auswächst; diese runde Struktur wird zur Metabasidie. – Gleich daneben: Eine junge Probasidie nach der Verschmelzung des männlichen Gametangiums (kurzer Hyphenast) mit dem kugeligen weiblichen Gametangium. – Rechts oben: Terminal zum weichlichen Gametangium aufgeblähte Hyphenspitze. – Links daneben: Verzweigte Hyphe mit schnallentragenden Probasidien, aus denen an einem Stielchen die Metabasidien in zwei verschiedenen Stadien stehen; unten zwei der vier Basidienzellen mit je einer Spore; darüber Metabasidie mit vier Sporen.
Zeichnung nach Bauer et al. (2009)
Eingestellt am 24. Oktober 2026
.
Agaricostilbomycetes, Stielköpfchenpilze
4 Ein nächster Schritt? (HP)
.
Durch moderner Pilze rasenden Wuchs
Von riesigem Spitzenköper[1] gedrängt,
Enteilt der Faden dem seitlichen Zweig.
Ohne Chance auf Kopulation,
Krümmt sich folglich nach hinten,
Sucht Ersatz, warum auch immer, subterminal.
.
Der Kerne synchrone Teilung erfolgt entlang des Fadens, auch hinein in den Bogen,
Wie einstens vor der Gametangiogamie[2];
Ein Umweg, den es zur Teilung des Dikaryons[3] bestimmt nicht hätte gebraucht,
Doch einmal erfunden, blieb der Modus der Schnallenbildung[4] tabu.
.
Weil der Bogen schräg nach rückwärts verläuft,
Ein Septum an seiner Basis von seiner Mutterhyphe ihn trennt,
Steht nun, wie heut so üblich, der stumpfe Winkel der beiden Septen nach vorn,
Der überstumpfe weist an die Basis der Hyphe zurück.
.
Wer fragt sich nicht, was der Aufwand für Schnallen denn soll!
Ziehen Pilze nicht Vorteil daraus,
Wenn in der Hyphe Vor- und Rückwärtstransport
Zugleich erfolgen und so vermeiden jeglichen Stau?
Liegt doch jede der Septen porusversehen am Weg!
Was läuft zentral, was über der Schnalle Pass?
.
Das ganze Ausmaß des Schnallensyndroms
Wird erst bei Agaricomycotina[5] vollkommen klar:
Sie verzichten vielfach wieder auf Schnallen,
Finden jedoch raffinierten Ersatz. –
.
Wer jetzt auf Pezizomycotina[6] verweist,
Auf ihrer Haken[7] Entstehung, und denkt,
Gametangiogamie liefert bestimmt nicht den Grund:
Vergisst, sie war letztlich nicht von Erfolg!
Keine Zygote[10] resultierte daraus;
Vielmehr wachsen dikaryotische[11] Hyphen hervor.
So bleibt noch der Kerne Sehnsucht unerfüllt!
.
Auch Haken repräsentieren womöglich Gametangiogamie.
Doch wegen der Endzellkrümmung verschmilzt er gleich unterhalb mit sich selbst.
Wird, nachdem Querwände gezogen, von einem Hügel empfangen,
Vielleicht als Memento der Gametangiogamie
Als er als Ast dazu noch nötig war.
Den Gewinn als Zygote trägt nur die Kuppe der letzten Krümmung davon.SL
.
Fußnoten
[1] Spitzenkörper: Eine dichteste Ansammlung Mehrtausender Vesikel in der wachsenden Hyphenspitze, die schon im Lichtmikroskop bei Phasenkontrast als dunkle, rundliche Struktur zu erkennen ist
[2] Gametangiogamie: Für sexuelle Fortpflanzung verschmelzende Gametangien
[3] Dikaryon, dikaryotisch: Zwei konträrgeschlechtliche haploide (n) Kerne [werden als (+)- und (–)-Kerne oder als α- und β-Kerne bezeichnet; unterscheiden sich ihre Behälter in Größe oder die Dikaryen bildenden Kerne in der Wanderungsrichtung, kann auch von männlichen (wandern zu ihren Partnern, die stationär bleiben) und weiblichen Kernen gesprochen werden], bilden funktionell eine Einheit (n+n), ohne miteinander zum diploiden Kern (2n) verschmolzen (K!) zu sein; sie teilen sich mitotisch synchron, um damit zwei Dikaryen zu bilden, sich zu verdoppeln. Im Entwicklungskreislauf erfolgt zwar zunächst die Plasmogamie (P!), doch die Karyogamie (K!) zum diploiden (2n) Kern wird erst kurz vor der Meiose (R!) vollzogen. Man spricht hier auch von verzögerter Karyogamie. Dikaryen treten bei Taphrinomycotina, Pezizomycotina, Pucciniomycotina, Ustilaginomycotina und Agaricomycotina auf.
[4] Schnallen: Formen sich bei vielen Agaricomycotina im Zuge der Zellteilung einer Hyphe. Seitlich wächst ein etwas einwärts gekrümmter Auswuchs nach hinten, findet Kontakt zu einer darunterliegenden Stelle der Hyphe; gleichzeitig teilen sich zwei Kerne (ein Dikaryon) synchron mitotisch, wobei sich die Tochterkerne eines der beiden Kerne in der ursprünglichen Hyphe nach unten, beziehungsweise nach oben separieren. Eine Tochter des zweiten Kerns begibt sich in den gekrümmten Auswuchs, der andere wandert in der Hyphe nach oben und bildet mit dem zweiten wieder ein Dikaryon. Zwei Querwände werden nun eingezogen: Eine Querwand trennt den Auswuchs von seinem Ursprung, die zweite bildet sich nahe oberhalb des Auswuchses quer in der Hyphe. Diese zweite trennt das Dikaryon im oberen Teil der Hyphe von der Partie darunter, die momentan nur einen Kern besitzt. Um wieder ein Dikaryon bilden zu können, bildet der Auswuchs mit seiner Berührungsstelle an der Hyphe eine Anastomose, lässt seinen Kern zum wartenden wandern, womit auch hier wieder ein Dikaryon etabliert ist. An der Stelle des Auswuchses entsteht eine Verdickung, die als Schnalle bezeichnet wird, geht sie doch auf den rückwärts gerichteten Auswuchs zurück, der wie der Dorn einer Gürtelschnalle aussieht
[5] Agaricomycotina: Champignonverwandte i.aw.S. (Basidiomycota – Dikarya – Unbegeißelte Chitinpilze – Fungi – Opisthokonta – Eukarya)
[6] Pezizomycotina: Becherlingsartige i. w. S. (Ascomycota – Dikarya – Unbegeißelte Chitinpilze – Fungi – Opisthokonta –…)
[7] Haken: Formen sich bei vielen Pezizomycotina im Zuge der Zellteilung der sekundären ascogenen Hyphen. An der Hyphenspitze wächst ein etwas gekrümmter Auswuchs nach unten, findet Kontakt zu einer darunterliegenden Stelle der Hyphe; gleichzeitig teilen sich die zwei Kerne des Dikaryons synchron mitotisch, wobei sich ein Tochterkern des eines Kerns in der ursprünglichen Hyphe nach unten separiert, der andere in die apikal entstandene Krümmung der Hyphe. Die Tochterkerne des anderen Kerns begeben sich zum einen in den gekrümmten Auswuchs, zum andern nach oben, um in der Hakenbiegung mit dem zweiten Kern wieder ein Dikaryon zu bilden. Zwei Querwände werden nun eingezogen: Eine Querwand trennt den Auswuchs von seinem Ursprung, die zweite bildet sich nahe oberhalb des Auswuchses quer in der Hyphe. Diese zweite trennt das Dikaryon im oberen Teil der Hakenbiegung von der Partie darunter, die momentan nur einen Kern, wie auch die Hakenspitze, besitzt. Um wieder ein Dikaryon bilden zu können, bildet der Auswuchs mit seiner Berührungsstelle an der Hyphe eine Anastomose, lässt seinen Kern zum wartenden wandern, womit auch hier wieder ein Dikaryon etabliert ist. An der Stelle des Auswuchses entsteht eine Verdickung, Reminiszenz des Hakens, geht sie doch auf den rückwärts gerichteten Auswuchs zurück.
[8] Antheridium (Ascomycota): Männliches Gametangium, das seine Kerne in das weibliche einspeist
[9] Ascogon: Ein meist bauchiges, vielkerniges weibliches Gametangium, das mit einem Fortsatz dem männlichen Gametangium es erleichtert, es zu umschlingen, um an einer Stelle die trennenden Zellwände für Plasmogamie aufzulösen
[10] Zygote: Diploide Zelle, die nach der Verschmelzung zweier haploider Kerne, im Zuge der sexuellen Fortpflanzung entstand
[11] Dikaryon, dikaryotisch: Zwei konträrgeschlechtliche haploide (n) Kerne [werden als (+)- und (–)-Kerne oder als α- und β-Kerne bezeichnet; unterscheiden sich ihre Behälter in Größe oder die Dikaryen bildenden Kerne in der Wanderungsrichtung, kann auch von männlichen (wandern zu ihren Partnern, die stationär bleiben) und weiblichen Kernen gesprochen werden], bilden funktionell eine Einheit (n+n), ohne miteinander zum diploiden Kern (2n) verschmolzen (K!) zu sein; sie teilen sich mitotisch synchron, um damit zwei Dikaryen zu bilden, sich zu verdoppeln. Im Entwicklungskreislauf erfolgt zwar zunächst die Plasmogamie (P!), doch die Karyogamie (K!) zum diploiden (2n) Kern wird erst kurz vor der Meiose (R!) vollzogen. Man spricht hier auch von verzögerter Karyogamie. Dikaryen treten bei Taphrinomycotina, Pezizomycotina, Pucciniomycotina, Ustilaginomycotina und Agaricomycotina auf.
SL Bauer R, Begerow D, Sampaio JP, Weiß M, Oberwinkler F (2006) The simple-septate basidiomycetes; a synopsis. Mycol Progress 5(1): 41-66. – Weiß M, Bauer R, Begerow D (2004) Spotlights on Heterobasidiomycetes. In Agerer R, Piepenbring MN, Blanz P (eds) Frontieres in Basidiomycote Mycology, pp 7-48. IHW-Verlag. – Bauer R (2004) Basidiomycetous interfungal cellular interactions - a synopsis, pp 325-338. IHW-Verlag. – Bauer R, Metzler B, Begerow D, Oberwinkler F (2009) Cystobasidiopsis nierenbergiae, a new Agaricostilbomycete (Pucciniomycotina). Mycol Res 113(9): 960-066.
Eingestellt am 24. Oktober 2026
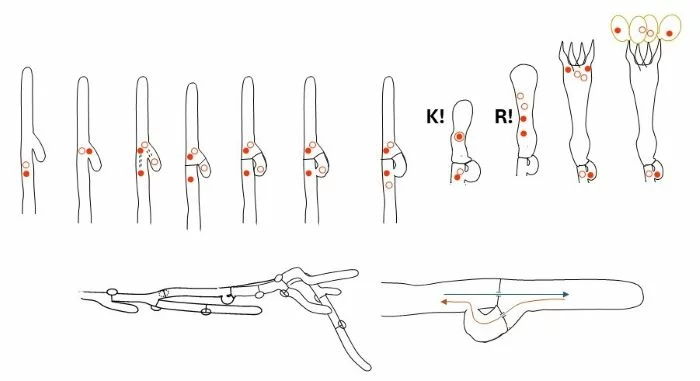
Schnallen, Poren und möglicher interner bidirektioneller Transport (ppt; Reinhard Agerer)
Oben: Seitlich wächst an der Hyphe (von links nach rechts) ein etwas einwärts gekrümmter Auswuchs nach hinten (1), findet Kontakt zu einer darunterliegenden Stelle der Hyphe (2); gleichzeitig teilen sich zwei Kerne (ein Dikaryon) synchron mitotisch, wobei sich die Tochterkerne eines der beiden Kerne in der ursprünglichen Hyphe nach unten, beziehungsweise nach oben separieren. Eine Tochter des zweiten Kerns begibt sich in den gekrümmten Auswuchs, der andere wandert in der Hyphe nach oben und bildet mit dem zweiten wieder ein Dikaryon (3). Zwei Querwände werden nun eingezogen: Eine Querwand trennt den Auswuchs von seinem Ursprung, die zweite bildet sich nahe oberhalb des Auswuchses quer in der Hyphe (4). Diese zweite trennt das Dikaryon im oberen Teil der Hyphe von der Partie darunter, die momentan nur einen Kern besitzt. Um wieder ein Dikaryon bilden zu können, bildet der Auswuchs mit seiner Berührungsstelle an der Hyphe eine Anastomose (5), lässt seinen Kern zum wartenden wandern, womit auch hier wieder ein Dikaryon etabliert ist (6). An der Stelle des Auswuchses entsteht eine Verdickung, die als Schnalle bezeichnet wird, geht sie doch auf den rückwärts gerichteten Auswuchs zurück, der wie der Dorn der Schnalle eines Gürtels aussieht.
Links unten: Schnallenmycel mit Schnallen in unterschiedlicher Ansicht. Der stumpfe Winkel zeigt immer nach vorne, Richtung Hyphenspitze, der überstumpfe in Richtung Basis.
Rechts unten: Eine hypothetische Möglichkeit des bidirektionellen Transports in einer Schnallenhyphe durch den Porus. Blauer Pfeil: Richtung Hyphenspitze; brauner Pfeil: Richtung Hyphenbasis. Ein Transportstau würde auf diese Weise verhindert werden können.
Eingestellt am 24.Oktober 2026
.
Endpunkt erreicht!