Pucciniales
zum Glossar mit Abbildungsverweisen über:

Pucciniales, Rostpilzartige
1 Was Rostpilze vereint (AP)
.
Mit einem Riesenerfolg gipfelt der Pucciniomycotina Evolution!
Achttausendundsiebenhundert Arten und mehr bringen sie auf die Vielfaltswaage,
Mehr als neunzig Prozent tragen Pucciniales zu ihrer Diversität bei,
Nehmen nur lebende Pflanzen um ihre Kreise zu zieh’n[1].
.
Ganz zu Anfang schon legten sie dafür den Grundstein
Als das Zellwanddurchbohren ihnen gelang,
Nahrung nicht durch filternde Wand nur zu nehmen,
.
Eine besondere Weise der Zelle Widerstände zu brechen,
Erfanden Ahnen schon, denn heute, nach
Hunderten Millionen Jahren, leben alle mit dem gleichen Patent,
Zumindest seit ihre Megadiversifizierung vor gut hundert Millionen Jahren begann.
.
Interzellulär[4] zunächst zwängen sich Hyphen voran, bevor sie Haustorien bilden,
Drängen sich eng an die Zellen heran,
Formen besondere Schichten, sich an die Wand zu kitten,
Des Bohrers Druck zu begegnen, nicht abgehoben zu werden;
Grenzen die geweitete Stelle schon ganz zu Beginn mit
Querwand
Als Haustorienmutterzelle[5] gegen das
restliche Hyphenstück ab.
.
Kaum ist die Zellwand energiesparend mit dünner Kanüle durchbohrt,
Erweitert sich des Haustoriums Vorhut leicht,
Nimmt Kontakt auf mit der Wirtszelle Plasmalemmamembran,
Befestigt sie und imprägniert dort ihren eigenen Hals mit einer Wanddichtsubstanz.
.
Dieses Halsband[6] scheint ungeregelten Durchfluss durch die Zellwand zu stoppen,
– Durch des Haustoriums und der feinen Hyphe Inneres soll der Abtransport geh‘n –
Nichts Kostbares auf dem Weg zu verlieren,
Bevor es nicht sicher verwahrt.
.
Erst nach dem Hals – wo sonst –
Erweitert zum Kopf sich die bohrende Hyphe,
Lässt beide Kerne oft aus der Mutterzelle in die Erweiterung wandern
Und stülpt, je nach Verwandtschaft, noch Finger hinaus.
.
Nur ein wenig wehrt sich die Pflanze;
Gewährt dem Schmarotzer nicht direkten Zutritt,
Hüllt sich mit ihrem Plasmalemma stets gut ein,
Umgibt ihn zunächst basal mit Matrixmaterial[7].
.
Viele Pflanzen gestalten die Hüllmembran[8] in des Haustoriums Form,
Andere hängen sie rundherum wie einen Sack als Vorhang herum.
Wer aber meint, Einfluss hätte die Pflanze darauf, hat sich geirrt:
Der Pilz manipuliert, warum auch immer, dazu den Wirt.
.
Fußnoten
[1] Parasit, Schmarotzer: Ein Organismus lebt auf Kosten eines anderen
[2] Haustorien, Senker (Pilze): Spezielle Ausstülpungen von Hyphen, die in Zellen fremder Organismen eindringen, dabei aber nicht direkten Kontakt zum Protoplasten bekommen, bleibt doch die Zellmembran der Wirtszellen erhalten; sie vergrößert sich hingegen wenn nötig gar, um den voluminöser werdenden Eindringling zu umhüllen, es werden zudem Zellwandmoleküle des Wirts dazwischen abgelagert, die allerdings unter dem Einfluss des Parasiten dünnschichtig bleiben und sich nicht, wie für eine Zellwand typisch wäre, geregelt ordnen. Über diese Haustorien werden Substanzen dem Protoplasten entnommen
[3] Plasmalemma: Zellmembran (Lipiddoppelmembran) von Organismen; wird oft als Gegenstück zum Tonoplasten betrachtet, der im Zellinneren eine größere Saftvakuole umgibt
[4] Interzellulär (allgemein): zwischen Zellen
[5] Haustorienmutterzelle (Pucciniales): Die eindringende dünne Hyphe des späteren Haustoriums wird von der Hyphe mit einer Querwand abgegrenzt und wird damit zur Mutterzelle, bildet sie doch im Laufe ihrer Entwicklung das in die Zelle eindringende Haustorium
[6] Haustorium-Halsband, engl. -Neckband (Erysiphales, Pucciniales): Spezialisierte, ringförmige im TEM dunkel kontrastierende Struktur im Halsbereich des Haustoriums; bezieht extrahaustoriale Membran, extrahaustoriale Matrix und Zellwand des Haustoriums mit ein.
[7] Interfaziale Matrix, Interspace, Zwischenraum (Endomykorrhiza, Haustorium): Raum zwischen Pilzzellwand und dem Plasmalemma der Pflanze, der nur mit kaum organisiertem Zellwandmaterial der Pflanze gefüllt ist
[8] Extrahaustoriale Membran: Pflanzenplasmalemma, das dem Wachstum des Haustoriums folgte und es damit umgibt; in die Zelle hineinvergrößertes Plasmalemma
Eingestellt am 24. Oktober 2026
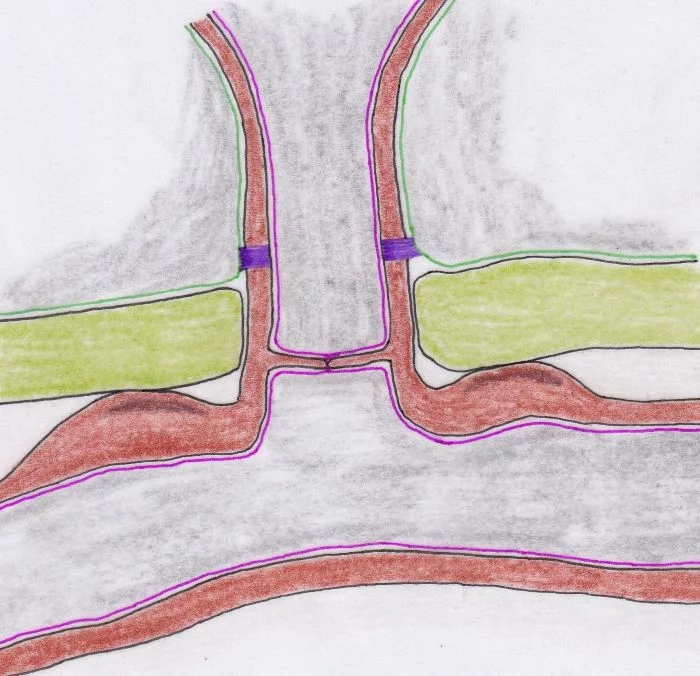
Haustorium der Pucciniales (Tusche, Fineliner, Kreide; Reinhard Agerer)
Ein Rostpilz (Zellwand braun; Plasmalemma pink, Protoplast grau) dringt mit dünner Hyphe (hier aus Übersichtlichkeit überdimensioniert dargestellt; in Wirklichkeit fünf Mal dünner) aus einer Interzellulare (rosagrau schattiert) in eine Pflanzenzelle (Zellwand grün; Plasmalemma grün, Protoplast grau) ein. Als Widerlager bildet er einen engen Kontakt zur Pflanzenzelle.
Typisch für Pucciniales ist erstens eine Querwand, die vor der finalen Gestaltung des Haustoriums eingezogen wird; die noch nicht differenzierte dünne Hyphe wird damit als Haustoriummutterzelle bezeichnet, da aus ihr erst das Haustorium entsteht. Zweitens charakterisiert die Haustorien der Pucciniales ein Haustorium-Halsband (violett), das vom Plasmalemma der Pflanze (extrahaustoriale Membran) ausgehend, die extramatrikale Matrix, die zwischen extrahaustorialer Membran und Haustorienzellwand liegt, über die gesamten Dicke der Haustorienzellwand verbindet. Es unterbindet womöglich den Substanzfluss in diesem Bereich und lenkt ihn so auf den Protoplasten der Hyphe.
Nach McTaggert & Begerow (2018), Fig. 4-3, 5, Seite79 und Szabo LJ & Buschnell WM (2001), Fig. 1B, Seite 7654.
Eingestellt am 24. Oktober 2026
.

Pucciniales, Rostpilzartige
2 Die treibende Kraft, oder: der große Sprung (AP,TP)
.
Vielleicht trugen damals immer wieder Winde
Farnwedel[3] entlang weit hinauf,
Dorthin, wo Nacktsamerblätter[4] sich reckten,
Und der Süße verfall’ne Insekten[5] dort mit hohem Genuss
Saft aus der Tiefe nahmen und doch, weil sie zu viel davon hatten,
Den Überschuss ganz nah deponierten, am Blatt[6]:
Landenden Sporen als sprudelnde Quelle fürs Leben.
.
Nahmen das achtlos Vergoss’ne mit Freude entgegen
Zum Füllen ihrer bescheid’nen Reserven,
Bevor sie dem Blatt mit einigem Mühen
Festere Nahrung für längeres Bleiben entnahmen.
.
Nun erst verspürten die baldigen Roste hautnah der Ahnen Versäumnis,
Hefen[7], ergänzend zu Hyphen, wie nahe Verwandte dies taten, heranzuziehen,
Die mit Hilfe agiler Insekten sich finden und
Zwei Kerne für immer aneinanderbinden[8].
.
Freilich gaben sich viele Sporen[9] gerne den Winden hin,
Landeten dennoch weit voneinander,
Hängen doch Blätter rundum zuhauf!
Klein, aber bedeutend der Schritt, den die Evolution ihnen lehrte:
Wer folgende Wege betritt,
Hat nicht nur vielleicht, sondern bestimmt, Hefen etwas voraus:
.
Warum sollten nur Hefen ohne Pause Zellen gebären?
Machten es Basidien ferner Verwandter[10] nicht vor,
Wie aus einer Zelle, sofern ein Kern in ihr blieb,
Sporen wiederholt aus ihr sprießen,
Sie aber, der Hefebildung noch mächtig, dann sogleich,
Wenn etwas Zucker verfügbar, sich sprossend vermehrten?
.
Mitotisch[11] in Reihe wurden auch sie
– Meiosen[12] waren längstens gescheh‘n –
In der Pseudobrandsippe anfänglichen Wehen geboren.
Warum sollten sie jetzt darin ein Vorbild nicht seh‘n?
.
Hyphen, vielleicht schon dichter gepackt,
Stehen senkrecht aus des Blattes Eb‘ne hervor,
Schnüren an der Spitze, dort, wo sie noch jung
Und Zellwände noch nicht endgültig dicht
– So wie Basidienzellen dies andernorts[13] tun –
Zelle um Zelle einfach so ab,
Geben, die Hyphen können sich‘s leisten,
Etwas Zucker in Säften mit auf den Weg.
.
Bleiben zusammen, sprossen nicht hefig,
Glitzern und werben um der Insekten Besuch, die,
Froh vielleicht um den Nachtisch, den ihnen das Blatt präsentiert, sie nehmen und
Suchen, ob nicht andernorts auch noch ein Tröpfchen für sie zum Naschen liegt.
.
Insekten transportieren, vermischen womöglich die Zellen.
Sie aber haben nichts miteinander zu tun;
Können nicht, wollen womöglich nicht, miteinander sich paaren:
Ihr Ziel aber wäre fast schon erreicht: kehrten zurück sie zum Farn.
Vielleicht nahmen sie damals wieder mit Schildläusen vorlieb.
Zweifach war der Weg zurück ihnen aber versperrt:
Wer sucht schon auf Farnen, wenn sie auf Blättern von Bäumen Nachspeise finden?
Und – ihr einzelner Zellkern erlaubte es nicht, in Farnen zu siedeln.
.
Zweikernig nur lassen sich Farne parasitieren!
Mit Hilfe von Winden, möglichst Farnwedel damit zu treffen,
Hat die wichtigsten Schritte zum Rostpilz getan:
.
Von Insekten gebrachte haploide Konidien verschmelzen mit Hyphen am Nacktsamerblatt,
Speisen den Kern in die nächstbeste Hyphenzelle[16]
– Als Spermatien[17] dienen sie, nicht als Konidien –;
Querwandporen durchwandernd, nimmt er am Ende sich einen Partner.
Dikaryotisch geworden, entsteh‘n auf der anderen Seite des Blatts
.
Was hat der Rostpilz damit erreicht?
Heute benannt als Heterözie[22].
Brachte geschickt kompatible[23] Zellen zusammen,
In Spermogonien[24] gebildet, auch Pycniden benannt.
Teliosporen[25], den Farnen verbunden, an ihnen gebildet, charakerisierten sie damals
Und dikaryotische Sporen an eines Nacktsamers Blatt
Namens Aecidiosporen, als Rückkehrgefährte hin zum Farn.
.
Fußnoten
[1] Basidiosporen: Von Basidiomycota, von Ständerpilzen, nach außen gebildete Meiosporen
[2] Sporenabschleudern (Basidien): Werden Basidiosporen oder Sekundärsporen aktiv abgeschleudert, sind sie immer bilateralsymmetrisch mit flacher oder leicht eingedellter Seite geformt und sitzen mit einem Anhängsel (Apikulus) mit dieser ihrer Bauchseite an einem leicht bogig gekrümmten Sterigma; beides zusammen, bilaterale Spore und gekrümmtes Sterigma, sind Voraussetzung für aktives Abschleudern. Da die Basidiospore ganz, oder zumindest im unteren Teil noch mit Sterigmenwandung umgeben ist, kann sich dort zwischen Spore und der genannten Wandung osmotisch bewirkt ein Tropfen bilden, der, wenn groß genug, die Sterigmenand an der Sporenbasis (am Apikulus) platzen lässt und folglich nach dem Rückstoßprinzip die Spore vom Sterigma wegkatapultiert.
[3] Farne: Pteridophyta s.s. (Pteridophyta s.l. – Trimerophyta – Eutracheophyta – Embryophyta – Streptophyta –…)
[4] Nacktsamer: Gymnospermen (Spermatophytina ohne Magnoliatae)
[5] Insekten: Hexapoda (Tetraconata – Mandibulata – Arthropoda – Panarthropoda – Ecdysozoa –…)
[6] Nektar i.w.S.: Süßliche, Insekten anlockende Flüssigkeit
[7] Basidiomycetoide Hefen(bildung): Enteroblastische Hefenbildung, wobei nur die inneren Zellwandschichten der bildenden Zelle zur Bildung der neuen Zellwand herangezogen werden
[8] Plasmogamie: Verschmelzung der Protoplasten zweier Zellen im Zuge sexueller Fortpflanzung; abgekürzt P!
[9] Basidiosporen
[10] Microbotryomycetes: Pseudobrandpilze (Der moderne Rest – Pucciniomycotina – Basidiomycota – Dikarya – Unbegeißelte Chitinpilze –…)
[11] Mitose, mitotisch: Im Kern mittig in einer Ebene versammelte Chromosomen bildeten je zwei identische Chromatiden, die bei der Mitose durch Mikrotubuli separiert werden und, von einer Zellwand getrennt, als identische Chromosomensätze der entstandenen Zellen wirken; abgekürzt M!
[12] Meiose, meiotisch: Meiose dient der Reduktion eines diploiden Chromosomensatzes zu haploiden Sätzen. Dabei werden einander entsprechende Chromosomen, im Kern sich dann mittig in einer Ebene gegenüberstehend, gepaart und anschließend in entgegengesetzter Richtung („polwärts“) separiert. Dieser Vorgang wird auch als Reduktionsteilung (oft abgekürzt als R! und zugleich stellvertretend für die ganze Meiose verwendet) bezeichnet. Da die voneinander getrennten haploiden Chromosomen schon zu Chromatiden verdoppelt sind, schließt sich an die Reduktionsteilung noch eine mitotische Teilung an, so dass vier haploide Kerne letztlich vorliegen; abgekürzt mit R!
[13] Microbotryomycetes
[14] Dikaryon, dikaryotisch: Zwei konträrgeschlechtliche haploide (n) Kerne [werden als (+)- und (–)-Kerne oder als α- und β-Kerne bezeichnet; unterscheiden sich ihre Behälter in Größe oder die Dikaryen bildenden Kerne in der Wanderungsrichtung, kann auch von männlichen (wandern zu ihren Partnern, die stationär bleiben) und weiblichen Kernen gesprochen werden], bilden funktionell eine Einheit (n+n), ohne miteinander zum diploiden Kern (2n) verschmolzen (K!) zu sein; sie teilen sich mitotisch synchron, um damit zwei Dikaryen zu bilden, sich zu verdoppeln. Im Entwicklungskreislauf erfolgt zwar zunächst die Plasmogamie (P!), doch die Karyogamie (K!) zum diploiden (2n) Kern wird erst kurz vor der Meiose (R!) vollzogen. Man spricht hier auch von verzögerter Karyogamie. Dikaryen treten bei Taphrinomycotina, Pezizomycotina, Pucciniomycotina, Ustilaginomycotina und Agaricomycotina auf
[15] Aecidiosporen, Aeciosporen (Pucciniales): Erste Sporengeneration (Sporengeneration I), die nach Dikaryotisierung durch Spermatisierung oder Somatogamie auf dem sog. Nebenwirt entsteht; dienen der Ausbreitung durch den Wind auf den Hauptwirt zur sexuellen Fortpflanzung und sind für den Transport leicht bräunlich gefärbt und mit auftriebserhöhenden Ornamenten versehen.
[16] Spermatisierung (Fungi): Auf einer Empfängnishyphe landendes Spermatium speist seinen Kern in die Hyphe ein (P!), die den männlichen Kern zu einem tief liegenden Partner leitet und damit das Dikaryon etabliert.
[17] Spermatien: Unbegeißelte männliche Fortpflanzungszellen (Gameten, bei Rhodophyta, bei manchen Pezizomycotina und Pucciniomycetes)
[18] Aecidiosporen
[19] Aceidiosporen
[20] Wirt (Parasiten, Symbionten): Opfer eines Parasiten, Partner eines Symbionten
[21] Lebenskreislauf, Lebenszyklus, Entwicklungszyklus, Entwicklungskreislauf: Ein Kreislauf (eigentlich ist es eine Schraube, weil immer Neues entsteht, das zwar dem Anfänglichen gleicht, doch zeitlich später kommt), in dem sexuelle Fortpflanzung erfolgt. Zusätzlich kann noch in regelmäßigem Wechsel eine Phase der asexuellen Vermehrung eingeschlossen sein
[22] Heterözisch: Im Lebenszyklus werden zwei verschiedenartige Wirte benötigt
[23] Kompatibel: zueinanderpassend; sexuell verträglich
[24] Spermogonien, Pycniden, (Fungi): Krugförmige Behälter für Konidien oder Spermatienr
[25] Teliosporen: Eine dickwandige Dauersporen als Verbreitungseinheiten, die zumindest anfangs ein Dikaryon enthalten; im Entwicklungskeislauf der Pucciniales als Sporengeneration III geführt)
Eingestellt am 24. Oktober 2026
.

Pucciniales, Rostpilzartige
3 Eine noch zu füllende Lücke (HP)
.
Womöglich standen Uredinellas[1] Ahnen Pate für das,
Was Rostpilzen damals auf den Nägeln so brannte:
Ihre Basidiosporen[2] gehen auf Reise und kommen vielleicht
Als dikaryotische Teliosporen[3] wieder zurück;
Doch wer soll Farne wieder besiedeln, andere Pflanzen neu rekrutieren,
Wenn Teliosporen dorthin nicht finden den Weg?
.
Uredinella ließ neben Teliosporen eine zweite Art noch entstehen:
Als weitere Waffe – auf Schildläuse[6] hat sie’s abgesehen –
Um damit nächstliegende Beute zu treffen.
.
Rostpilze nahmen sich Uredinellas Methode als Beispiel.
Doch an Wedeln[7], oft heftig schaukelnd im Wind,
Trockneten zarte Konidien[8] umgehend aus,
Verlören rasch oft das Leben weitergebende Leben.
Nutzlos für jene, die solche sich formen, denn
Verloren wäre der einstige Vorteil,
Was nahe liegt, für sich zu gewinnen,[9]
Roste verzichten nicht gänzlich darauf.
.
Halten einige Überdauerungssporen lange Zeit dicht
Bis sie von heftigem Zittern des Wedels von ihrer Hyphe gebrochen,
Sich in Zwickeln von Fiedern[12] finden oder irgendwo sonst.
.
Aus der Spore kommt statt der Konidien ein Schlauch[13],
Dringt in Farnwedelfiedern umgehend ein:
Nun wird der Farn durch Uredosporen[14] besiedelt,
Wie der Fachmann sie nennt.
.
Ein wichtiges Ziel wurde damit erreicht:
Solange der Pflanze Schutzmaßnamen dagegen noch nicht vollendet
Und Neubesiedlung von großen Erfolgen gekrönt somit wird.
.
Fußnoten
[1] Uredinella coccidiophaga (Septobasidiales – Pucciniomycetes – Der moderne Rest – Pucciniomycotina – Basidiomycota –…)
[2] Basidiosporen: Von Basidiomycota, von Ständerpilzen, nach außen gebildete Meiosporen
[3] Teliospore: Eine dickwandige Dauerspore als Verbreitungseinheit, die zumindest anfangs ein Dikaryon enthält; im Entwicklungskreislauf der Pucciniales als Sporengeneration III geführt)
[4] Dikaryotische Konidien
[5] Asexuelle Vermehrung: Rein mitotisch bedingte Vermehrung, daher Individuen genetisch identisch
[6] Schildläuse: Sternorrhyncha (Hemiptera – Acercaria – Neoptera – Pterygota – Dicondylia – …)
[7] Farnwedel: Farnblatt
[8] Konidie: Asexuell und nach außen gebildete Verbreitungseinheit, die mit einer Hyphe oder hefeartig keimt
[9] Wie für Uredinella so typisch
[10] Teliospore: Eine dickwandige Dauerspore als Verbreitungseinheit, die zumindest anfangs ein Dikaryon enthält; im Entwicklungskreislauf der Pucciniales als Sporengeneration III geführt
[11] Keimporen (Fungi) Dickwandige, meist braunwandige Sporen (Ascosporen, Basidiosporen, Teliosporen, etc.) lassen eine kleine, meist runde Stelle in der Wand unverdickt, damit Hyphen (Konidien, Metabasidien) beim Keimen leichter die Wand durchbrechen können
[12] Fiedern (allgemein): Seitenstrahlen meist gleicher Gestalt einer gemeinsamen Achse entlang
[13] Keimhyphe
[14] Uredospore (Pucciniales): Asexuell entstandene, dikaryotische Verbreitungseinheit (Konidie), die als Nebenfruchtform der schnellen Vermehrung des Rostpilzes dient und nur auf den gleichen Wirten auskeimen kann, in denen die dikaryotische Phase, die Hauptfruchtform, gebildet werden kann; im Entwicklungskreislauf der Rostpilze als Sporengeneration II geführt
[15] Dikaryon, dikaryotisch: Zwei konträrgeschlechtliche haploide (n) Kerne [werden als (+)- und (–)-Kerne oder als α- und β-Kerne bezeichnet; unterscheiden sich ihre Behälter in Größe oder die Dikaryen bildenden Kerne in der Wanderungsrichtung, kann auch von männlichen (wandern zu ihren Partnern, die stationär bleiben) und weiblichen Kernen gesprochen werden], bilden funktionell eine Einheit (n+n), ohne miteinander zum diploiden Kern (2n) verschmolzen (K!) zu sein; sie teilen sich mitotisch synchron, um damit zwei Dikaryen zu bilden, sich zu verdoppeln. Im Entwicklungskreislauf erfolgt zwar zunächst die Plasmogamie (P!), doch die Karyogamie (K!) zum diploiden (2n) Kern wird erst kurz vor der Meiose (R!) vollzogen. Man spricht hier auch von verzögerter Karyogamie. Dikaryen treten bei Taphrinomycotina, Pezizomycotina, Pucciniomycotina, Ustilaginomycotina und Agaricomycotina auf
[16] Propagulen: Allgemeine Bezeichnung für Verbreitungseinheiten
Eingestellt am 24. Oktober 2026
.
Pucciniales, Rostpilzartige
4 Vollständiger Rostpilz-Lebenszyklus aus heutiger Sicht, Teil 1[1]
.
Auf der Berberitze[4] stachlig gezähntem, elliptischem Blatt.
Der Zufall trug diese beiden auf Flügeln des Winds,
Liegen weit entfernt jedoch an Spitze und Stiel.
.
So sehr sie Hyphen ins Blatt hineintreiben,
Sie blieben ohne Kontakt,
Auch wenn sie wachsend sich abermals mühten.
Viel einfacher wär es im Blatt sich zu paaren[5],
Ohne viel Aufwand, Kerne von Zelle zu Zelle zu schieben
Um der Aecidiosporen[6] Basislager zu bilden,
Doch jetzt müssen sie kompliziertere Wege gehen[7],
Die sie sonst sich hätten erspart.
.
Auf der Oberseite des Blatts dellen sie tief ihren Krug[8] mit Bedacht.
Nicht das Grün drücken sie ein,
Sie selbst rotten Hyphen zusammen,
Einen Behälter soll’n sie, des Spermatienschutzes[9] wegen, ergeben.
.
Vom Grund auf bis über die weiteste Stelle des Kruges hinaus
Stellen sie Hyphenenden zu dichten Massen zusammen,
Nur ihr Kopf bleibt frei, um Ketten von Pycnosporen[10] in den
süß-flüssigen Raum zu schicken
Bis die Mündung ein glänzender Hügel überwölbt.
.
Einzelne Hyphen ragen darüber hinaus[11].
Sie sollen des fernliegenden Partners Spermatien bekleben,
Damit sie in Tiefen zelldichter Versammlung mit einem andern sich paaren.
.
Die doppelkernig gewordene Zelle[14] treibt,
Sich ständig verzweigend, Polster von Hyphen gegen des Blattes untere Seite.
Bilden sie Ketten kubischer[17] Zellen mit je einer keilig geformten dazwischen:
Sie schiebt sich zwischen die großen hinein und stirbt,
Um den andern, den Aecidiosporen, bei ihrer Trennung zu dienen.
.
Die äußeren Hyphen bleiben steril,
Schließen sich eng aneinander, eine Wand dem Becher zu geben;
Verstärken nach außen weisende Wände,
Lassen die inneren dünn.
.
Wenn reif der Aecidie[18] Sporen,
– Leicht verdickt, pigmentiert, ornamentversehen, zeigen sich dann ihre Wände –
Springt, Zellen mit Wasser befüllend, ihre Hülle auf und
Sprengt des Blatts begrenzende Schicht, präsentiert die Sporen[19] dem Wind.
.
Sollen fliegen und fliegen bis in Feldern Weizen[20] sie finden;
Dort nur können sie keimen[21], in die Zellen wachsen
– Berberitzen sind von nun an passé –
Durchziehen Blätter und Halme mit dichtem Mycel.
.
Fußnoten
[1] Am Beispiel von Puccinia graminis: Schwarzrost (Pucciniaceae – Puccinieae – Pucciniales – Pucciniomycetes – Der moderne Rest –…)
[2] Basidiosporen: Von Basidiomycota, von Ständerpilzen, nach außen gebildete Meiosporen
[3] Kompatibel: zueinanderpassend; sexuell verträglich
[4] Berberitze: Berberis vulgaris (Berberidaceae – Ranunculales – Superranunculidae – Eudicotyle – Dicotyle –…)
[5] Somatogamie (Basidiomycota): Gewöhnliche Körperzellen, keine besonders gestalteten Zellen, keine Gametangien, verschmelzen, um zwei zueinander passende, kompatible Kerne für sexuelle Fortpflanzung zusammenzubringen
[6] Aecidiosporen, Aeciosporen (Pucciniales): Erste Sporengeneration (Sporengeneration I), die nach Dikaryotisierung durch Spermatisierung oder Somatogamie auf dem sog. Nebenwirt entsteht; dienen der Ausbreitung durch den Wind auf den Hauptwirt zur sexuellen Fortpflanzung und sind für den Transport leicht bräunlich gefärbt und mit auftriebserhöhenden Ornamenten versehen
[7] Spermatisierung (Fungi): Auf einer Empfängnishyphe landendes Spermatium speist seinen Kern in die Hyphe ein (P!), die den männlichen Kern zu einem tief liegenden Partner leitet und damit das Dikaryon etabliert
[8] Pycniden, Spermogonien (Fungi): Krugförmige Behälter für Konidien oder Spermatien
[9] Spermatien: Unbegeißelte männliche Fortpflanzungszellen (Gameten, bei Rhodophyta, bei manchen Pezizomycotina und Pucciniomycetes)
[10] Spermatien
[11] Empfängnishyphen (Pezizomycotina, Pucciniomycotina): Treten bei Pezizomycotina oft an die Stelle von Trichogynen, ragen dabei weit über die Oberfläche hinaus, besitzen dann kein typisches Ascogon, oder es fehlt von vorneherein (Pucciniomycotina); sind in der Lage, in ihrer Basis mit dem vom Spermatium eingespeisten männlichen Kern ein Dikaryon zu bilden
[12] Plasmogamie: Verschmelzung der Protoplasten zweier Zellen im Zuge sexueller Fortpflanzung; abgekürzt P!
[13] Zellkerne
[14] Dikaryon, dikaryotisch: Zwei konträrgeschlechtliche haploide (n) Kerne [werden als (+)- und (–)-Kerne oder als α- und β-Kerne bezeichnet; unterscheiden sich ihre Behälter in Größe oder die Dikaryen bildenden Kerne in der Wanderungsrichtung, kann auch von männlichen (wandern zu ihren Partnern, die stationär bleiben) und weiblichen Kernen gesprochen werden], bilden funktionell eine Einheit (n+n), ohne miteinander zum diploiden Kern (2n) verschmolzen (K!) zu sein; sie teilen sich mitotisch synchron, um damit zwei Dikaryen zu bilden, sich zu verdoppeln. Im Entwicklungskreislauf erfolgt zwar zunächst die Plasmogamie (P!), doch die Karyogamie (K!) zum diploiden (2n) Kern wird erst kurz vor der Meiose (R!) vollzogen. Man spricht hier auch von verzögerter Karyogamie. Dikaryen treten bei Taphrinomycotina, Pezizomycotina, Pucciniomycotina, Ustilaginomycotina und Agaricomycotina auf.
[15] Äqual: gleich
[16] Inäqual (allgemein): ungleich
[17] Kubisch: würfelförmig
[18] Aecidie: Lager (Fruchtkörper) der Aecidiosporen
[19] Aecidiosporen
[20] Saatweizen: Triticum sativum (Triticeae – Pooideae – BOP-Verwandtschaft – Poaceae – Poineae – …)
[21] Es entstanden einige Formen, die auch andere Gräser infizieren
Eingestellt am 24. Oktober 2026
.
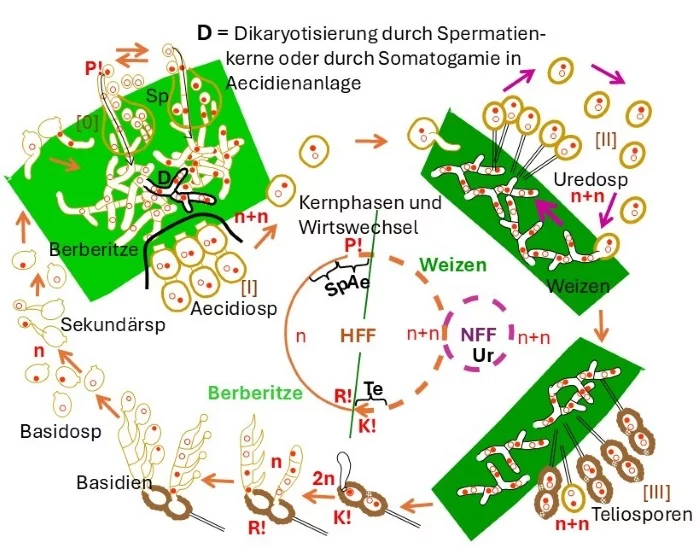
Vollständiger, ausführlicher Entwicklungszyklus der Pucciniales am Beispiel von Puccinia graminis (Schwarzrost des Weizens), Teil 1
Konträrgeschlechtliche (Punktkern, Kringelkern) haploide (n) Basidiosporen bilden Sekundärsporen, die letztlich auf ein Berberitzenblatt treffen müssen, um den Entwicklungskreislauf zu beginnen, keimen dort aus und Infizieren das Blatt.
Treffen sich die beiden haploiden, kompatiblen Mycelien, kann Somatogamie stattfinden, wobei die konträrgeschlechtlichen Kerne zweier Zellen zu einem Dikaryon (D; n+n) zusammentreten und zu dikaryotischem Myel auswachsen, das sich im Blatt parasitisch ernährt, verzweigt und damit vermehrt.
Alternativ dazu – wenn die konträrgeschechtlichen Mycelien (Punktkerne, Kringelkerne) zu weit voneinander entfernt sind, oder sogar nur in verschiedenen Blättern vorhanden sind – kann es, um ein Dikaryon und dikaryotisches Myzel zu entwickeln zur Spermatisierung kommen. Dazu werden kreuzungstypabängige (Punktkern, Kringelkern) Spermogonien (Pycniden) mit haploiden Spermatien (Pycno“sporen“) und entsprechenden, aus den Spermogonien herausragenden Empfängnishyphen gebildet. Von Insekten kann nun eine zur Empfängnishyphe kompatible Spermatie, die in einem süßschmeckenden Tropfen mit vielen anderen liegt, an die entsprechende Empfängnishyphe unbeabsichtigt beim Nektarsuchen herangebracht werden, die anschließend damit verschmilzt (P!), den Kern in die Hyphe einspeist, in einer Hyphenverknäuelung sich einen Partner sucht und mit ihm zum Dikaryon (D; n+n) wird. Daraus entwächst eine sich verzweigende dikaryotische Hyphe, die sich im Blatt parasitisch ernährt, verzweigt und damit vermehrt.
Am dikaryotischen Mycel (n+n) entwickeln sich dikaryotische (n+n) Aecidiosporen in Lagern (Fruchtkörper), in Aecidien. Diese dikaryotischen Aecidiosporen sind nun nicht mehr in der Lage, Berberitzen zu infizieren, sondern brauchen, um auszukeimen, Weizen oder gelegentlich andere Gräser. Über Windverbreitung gelangen sie dorthin. Ihr dikaryotisches Mycel durchwächst Blätter und Halme. Diese Sporengeneration wird mit der römischen Ziffer I belegt. Da man früher glaubte, Pycnosporen (Spermatien) seien Sporen, die der asexuellen Vermehrung dienen, erhielt diese Generation im Nachhinein die Kennzahl 0. Sie aber sind nicht in der Lage auszukeimen und Pflanzen zu infizieren, auch nicht, hefeartig zu wachsen.
Eigenem Vorlesungsmanuskript entnommen.
Anschließend wird der Entwicklungskreislauf ähnlich einer Powerpoint-Präsentation in vier einzelnen Abbildungen bis hin zur Besiedlung von Weizen dargestellt.
Eingestellt am 24. Oktober 2026
.
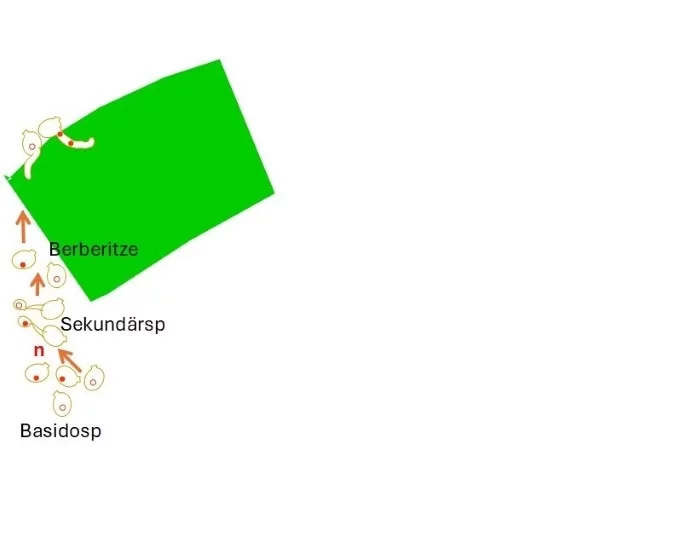
Konträrgeschlechtliche (Punktkern, Kringelkern) haploide (n) Basidiosporen bilden Sekundärsporen, die letztlich auf ein Berberitzenblatt treffen müssen, um den Entwicklungskreislauf zu beginnen, keimen dort aus und Infizieren das Blatt.
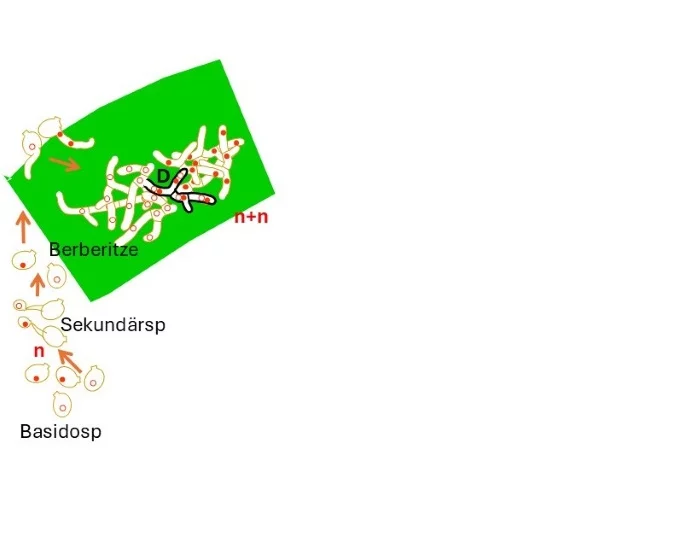
Treffen sich die beiden haploiden, kompatiblen Mycelien, kann Somatogamie stattfinden, wobei die konträrgeschlechtlichen Kerne zweier Zellen zu einem Dikaryon (D; n+n) zusammentreten und zu dikaryotischem Myel auswachsen, das sich im Blatt parasitisch ernährt, verzweigt und damit vermehrt.
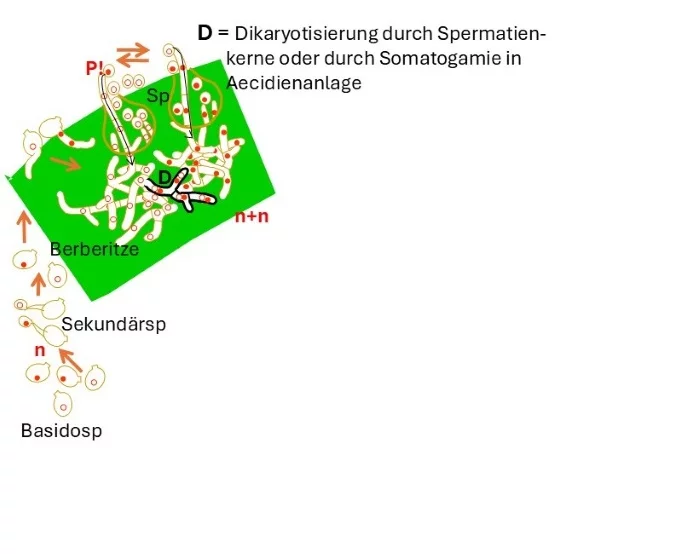
Alternativ dazu – wenn die konträrgeschechtlichen Mycelien (Punktkerne, Kringelkerne) zu weit voneinander entfernt sind, oder sogar nur in verschiedenen Blättern vorhanden sind – kann es, um ein Dikaryon und dikaryotisches Myzel zu entwickeln zur Spermatisierung kommen. Dazu werden kreuzungstypabängige (Punktkern, Kringelkern) Spermogonien (Pycniden) mit haploiden Spermatien (Pycno“sporen“) und entsprechenden, aus den Spermogonien herausragenden Empfängnishyphen gebildet. Von Insekten kann nun eine zur Empfängnishyphe kompatible Spermatie, die in einem süßschmeckenden Tropfen mit vielen anderen liegt, an die entsprechende Empfängnishyphe unbeabsichtigt beim Nektarsuchen herangebracht werden, die anschließend damit verschmilzt (P!), den Kern in die Hyphe einspeist, in einer Hyphenverknäuelung sich einen Partner sucht und mit ihm zum Dikaryon (D; n+n) wird. Daraus entwächst eine sich verzweigende dikaryotische Hyphe, die sich im Blatt parasitisch ernährt, verzweigt und damit vermehrt.
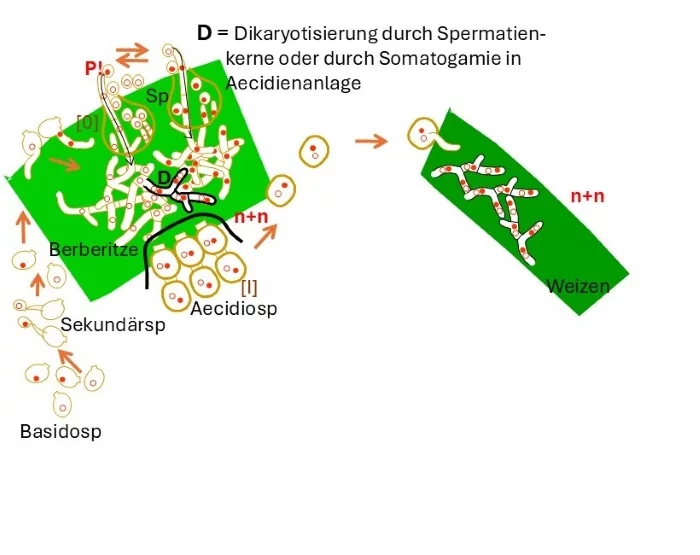
Am dikaryotischen Mycel (n+n) entwickeln sich dikaryotische (n+n) Aecidiosporen in Lagern (Fruchtkörper), in Aecidien. Diese dikaryotischen Aecidiosporen sind nun nicht mehr in der Lage, Berberitzen zu infizieren, sondern brauchen, um auszukeimen, Weizen oder gelegentlich andere Gräser. Über Windverbreitung gelangen sie dorthin. Ihr dikaryotisches Mycel durchwächst Blätter und Halme. Diese Sporengeneration wird mit der römischen Ziffer I belegt. Da man früher glaubte, Pycnosporen (Spermatien) seien Sporen, die der asexuellen Vermehrung dienen, erhielt diese Generation im Nachhinein die Kennzahl 0. Sie aber sind nicht in der Lage auszukeimen und Pflanzen zu infizieren, auch nicht, hefeartig zu wachsen.
Eigenem Vorlesungsmanuskript entnommen.
Eingestellt am 24. Oktober 2026
.
Pucciniales, Rostpilzartige
5 Vollständiger Rostpilz-Lebenszyklus aus heutiger Sicht, Teil 2[1] (AP)
.
Parasiten[2] von Pflanzen, nicht nur Pucciniales,
Sind dem Kommen und Gehen der Wirte unterworfen, auf Leben und Tod.
Wenn die Pflanzen erscheinen, anfangs sichtlich zu wenig stark zur Wehr,
Gilt es, mit Aecidiosporenarmaden[3] sie gut zu belegen,
Damit günstige Ausgangslagen für Neuinfektion massiv zu ergreifen,
Wenn möglich, binnen kürzerer Frist, in größerer Menge weiter Propagulen[4] zu bilden,
Denn oft erweist als recht kurz sich ein hilfreicher Zeitraum[5],
Neue Propagulen zu streuen für der Sippe[6] Erhalt.
.
Als schnelle Eingreiftruppe schicken Roste Uredosporen[7],
Unbesiedeltes sofort zu kolonisieren,
Zwischen bestehende Besiedlungsgebiete sich zu begeben,
Treu der Aufgabe, eigene Fitness[8] noch zu erhöh‘n,
Nachkommen um Nachkommen ins Leben zu rufen,
Bevor Wirte gilben und sich legen zur Ruh.
.
Der Gefahr des Vertrocknens begegnen sie
– Meist währt ihre Reise nur kurz im dichten Gestänge des Felds –
Durch leichtes Verdicken und Bräunen der Wand;
Ornamente erhöhen den Auftrieb[9], vermitteln bei Landung ausreichend Halt.
.
Mit rascher Folge von Uredosporen-Generationen verstärken sie das Infektionspotential
Bis im Hochsommer der Wirte Ableben naht; doch schon zuvor
Übernehmen später völlig den Ort, bilden selbst eigene Lager dazu.
.
Zweizellig, Wände erheblich verdickt und schwärzlich gebräunt,
– Nur Keimporen[12] bleiben hell – in gleicher Weise wie Uredosporen gestielt,
Überdauern sie an Stücken des Blatts oder wohin sie verweht,
Bis die Berberitze[13] endlich im Frühjahr wieder ergrünt.
.
Karyogamie[14] in der Teliospore,
Hinaus in die größer werdende Sphäre je einen gedrückt[19],
Vehement von der Rampe geschossen,
Vom Wind vertrieben, gelandet, mit Sterigma gekeimt[20],
Ein Berberitzenblatt glücklich erreicht:
So beginnt für Puccinia graminis das neue Jahr glücklich und gut.
.
Fußnoten
[1] Am Beispiel von Puccinia graminis: Schwarzrost (Pucciniaceae – Puccinieae – Pucciniales – Pucciniomycetes – Der Moderne Rest –…)
[2] Parasit, Schmarotzer: Ein Organismus lebt auf Kosten eines anderen
[3] Aecidiosporen, Aeciosporen (Pucciniales): Erste Sporengeneration (Sporengeneration I), die nach Dikaryotisierung durch Spermatisierung oder Somatogamie auf dem sog. Nebenwirt entsteht; dienen der Ausbreitung durch den Wind auf den Hauptwirt zur sexuellen Fortpflanzung und sind für den Transport leicht bräunlich gefärbt und mit auftriebserhöhenden Ornamenten versehen
[4] Propagulen: Allgemeine Bezeichnung für Verbreitungseinheiten
[5] Ein hilfreicher Zeitraum liegt dann vor, wenn Blätter frisch treiben und so die Cuticula und die Zellwände noch nicht ihre endgültige Widerstandskraft besitzen
[6] Sippe: Unter Sippe wird eine oft nicht genauer genannte Verwandtschaft verstanden, im Gegensatz zu Gruppe, die lediglich eine Ansammlung nicht näher verwandter Organismen bezeichnen will
[7] Uredosporen (Pucciniales): Asexuell entstandene, dikaryotische Verbreitungseinheiten (Konidien), die als Nebenfruchtform der schnellen Vermehrung des Rostpilzes dienen und nur auf den gleichen Wirten auskeimen können, in denen die dikaryotische Phase, die Hauptfruchtform, gebildet werden kann; im Entwicklungskreislauf der Rostpilze als Sporengeneration II geführt
[8] Fitness (biologische): Je mehr nachkommenerzeugende Nachkommen entstehen, umso fitter ist ein Organismus
[9] Auftrieb: Der Schwerkraft entgegengesetzte Kraft, der ein in eine Flüssigkeit oder in ein Gas eingetauchter oder untergetauchter Körper unterworfen ist; sie wirkt senkrecht zur Bewegungsrichtung eines Körpers in einem Medium (Flüssigkeit oder Gas). Ist z. B. das spezifische Gewicht eines Körpers in einer bestimmen Höhe des Wasserkörpers geringer als Wasser, steigt er, ist er schwerer, sinkt er, bis sich, hängig vom einwirkenden Druck der Wassersäule, die Größen gleichen
[10] Teliosporen: Dickwandige Dauersporen als Verbreitungseinheiten, die zumindest anfangs ein Dikaryon enthalten; im Entwicklungskreislauf der Pucciniales als Sporengeneration III geführt
[11] Uredolager: Lagerförmig zusammengestellte (Fruchtkörper) Uredosporen
[12] Keimporen (allgemein): Vorgebildete Öffnungsstellen eines biologischen Ruhestadiums, um die Keimung zu erleichtern
[13] Berberitze: Berberis vulgaris (Berberidaceae – Ranunculales – Superranunculidae – Eudicotyle – Dicotyle –…)
[14] Karyogamie: Verschmelzung zweier haploider Zellkerne; abgekürzt K!
[15] Meiose, meiotisch: Meiose dient der Reduktion eines diploiden Chromosomensatzes zu haploiden Sätzen. Dabei werden einander entsprechende Chromosomen, im Kern sich dann mittig in einer Ebene gegenüberstehend, gepaart und anschließend in entgegengesetzter Richtung („polwärts“) separiert. Dieser Vorgang wird auch als Reduktionsteilung (oft abgekürzt als R! und zugleich stellvertretend für die ganze Meiose verwendet) bezeichnet. Da die voneinander getrennten haploiden Chromosomen schon zu Chromatiden verdoppelt sind, schließt sich an die Reduktionsteilung noch eine mitotische Teilung an, so dass vier haploide Kerne letztlich vorliegen; abgekürzt mit R!
[16] Metabasidie: Der Begriff wird nur im Zusammenhang mit der meist dickwandigen Probasidie (Teliospore) verwendet; weil die Probasidie zur Basidie gehört, wird der daraus auswachsende, dünnwandige Teil, in der die Meiose stattfindet, als Metabasidie bezeichnet
[17] Sterigma, Sterigmen (Basidiomycota): Dünne Fortsätze an der Basidie, an der die Sporen sitzen
[18] Mitose, mitotisch: Im Kern mittig in einer Ebene versammelte Chromosomen bildeten je zwei identische Chromatiden, die bei der Mitose durch Mikrotubuli separiert werden und, von einer Zellwand getrennt, als identische Chromosomensätze der entstandenen Zellen wirken; abgekürzt M!
[19] Ein Kern der zweiten Mitose verbleibt bei manchen Rostpilzen in der Basidienzelle, ohne erneut eine Spore zu bilden
[20] Sekundärsporen: Werden Sporen der Basidiomycota genannt, die als Ballistokonidien am Sterigma von Basidiosporen gebildet worden sind
Eingestellt am 24. Oktober 2026
Vollständiger, ausführlicher Entwicklungszyklus der Pucciniales am Beispiel von Puccinia graminis (Schwarzrost des Weizens); Teil 2
Dikaryotische Aecidiosporen sind nun nicht mehr in der Lage, Berberitzen zu infizieren, sondern brauchen, um auszukeimen, Weizen oder gelegentlich andere Gräser. Über Windverbreitung gelangen sie dorthin. Ihr dikaryotisches Mycel durchwächst Blätter und Halme.
Dieses dikaryotische Mycel (n+n) bildet als Nebenfruchtform (NFF) asexuell, nur mitotisch entstandene Verbreitungseinheiten, dikaryotische Uredosporen (n+n), die Sporengeneration [II]. Sie sind nur in der Lage, die gleiche Wirtsart (Weizen) zu besiedeln; damit erhöht sich der Infektionsdruck auf Weizen, zugleich für den Parasiten die Chance, den Wirt zu besiedeln, ist doch das Zeitfenster für mögliche Besiedlung limitiert.
In den Uredosporenlagern (Uredien) werden später im Jahr erste Teliosporen (n+n), Sporengeneration [III] entstehen, bevor das Lager als reinsporige Telie nur noch dikaryotische, zweizellige Teliosporen bildet.
Diese Teliosporen überdauern an Ort, oder werden meistens vom Wind vertragen, die winterliche Jahreszeit und werden unter günstigen Bedingungen im Frühjahr in jeder der beiden Probasidien Karyogamie (K!) zum diploiden Kern (2n) vollziehen und durch den Keimporus die Metabasidien auswachen lassen, in der Meiose (R!) und Querwandbildung zur vierzelligen Basidie stattfinden. Danach formen sich die aktiv abspringenden, haploiden Basidiosporen (n), die Sekundärsporen bilden, die dann als Haploide wieder nur in der Lage sind, Berberitzen zu infizieren.
In einem Kreisschema zusammengefasst, zeigt sich eine haploide (n) Gametophytenphase mit haploidem Mycel und haploiden Spermogonien auf Berberitze (dünne durchgezogene, braune Linie als haploide Phase der Hauptfruchtform, HFF), in der die Dikaryotisierung (n+n) über Spermatisierung oder Somatogamie stattfindet, woran dikaryotische (n+n) Aecidiosporen entstehen, womit die dikaryotische (durchbrochene, dicke, braune Linie als Zeichen der dikaryotischen Phase der HFF) Sporophytenphase beginnt. Aecidiosporen benötigen einen Wirtswechsel zu Weizen, um dort auskeimen zu können. An Weizen erfolgt die asexuelle Vermehrung in Form von dikaryotischen (n+n) Uredosporen als Nebenfruchtform (NFF, violette durchbrochene Linie). Mit Teliosporen und deren Weiterentwicklung (K!R!) mit Metabasidien und Basidiosporen (n), beginnt wieder die gametophytische Phase. –
Hervorzuheben ist hier die Kopplung von Kernphase und Wirtswechsel: Der haploide (n) Gametophyt ist auf die Berberitze beschränkt, der dikaryotische (n+n) Sporophyt im Wesentlichen auf den Weizen; nur die aecidienbildenden dikaryotischen Hyphen parasitieren auch Berberitzen. Kompliziert wird der Lebenskreislauf durch das Vorkommen von drei dikaryotischen (n+n) Sporengenerationen (wobei eine dem Wirtswechsel dient (Aecidiosporen), eine der asexuellen Vermehrung (Uredosporen als „Konidien“), die dritte dem Abschluss der sexuellen Fortpflanzung (Teliosporen) und durch die beiden unterschiedlichen Möglichkeiten der Dikaryotisierung, durch Somatogamie oder durch Spermatisierung; Insekten (Spermatisierung) und Wind (Sporenausbreitung) sind als Vektoren in den Lebenskreislauf eingespannt.
Eigenem Vorlesungsmanuskript entnommen.
Anschließend wird der Entwicklungskreislauf ähnlich einer Powerpoint-Präsentation in vier einzelnen Abbildungen bis hin zur Besiedlung von Berberitzen dargestellt.
Eingestellt am 24. Oktober 2026
.
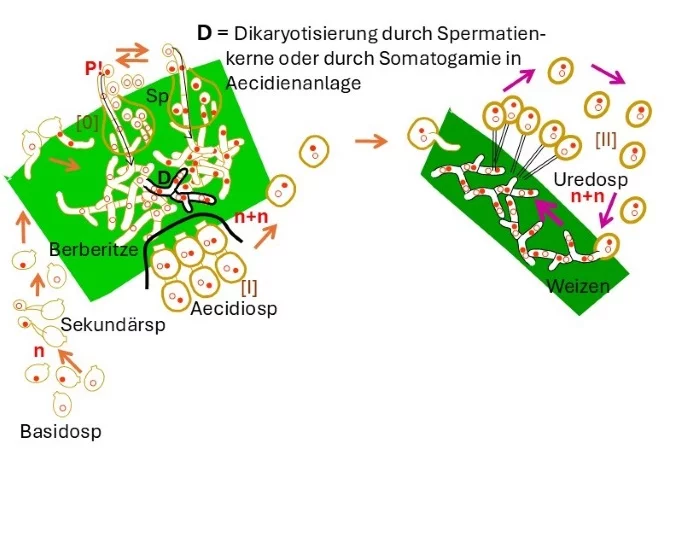
Vollständiger, ausführlicher Entwicklungszyklus der Pucciniales am Beispiel von Puccinia graminis (Schwarzrost des Weizens); Teil 2
Dikaryotische Aecidiosporen sind nun nicht mehr in der Lage, Berberitzen zu infizieren, sondern brauchen, um auszukeimen, Weizen oder gelegentlich andere Gräser. Über Windverbreitung gelangen sie dorthin. Ihr dikaryotisches Mycel durchwächst Blätter und Halme. Dieses dikaryotische Mycel (n+n) bildet als Nebenfruchtform (NFF) asexuell, nur mitotisch entstandene Verbreitungseinheiten, dikaryotische Uredosporen (n+n), die Sporengeneration [II]. Sie sind nur in der Lage, die gleiche Wirtsart (Weizen) zu besiedeln; damit erhöht sich der Infektionsdruck auf Weizen, zugleich für den Parasiten die Chance, den Wirt zu besiedeln, ist doch das Zeitfenster für mögliche Besiedlung limitiert.
Dieses dikaryotische Mycel (n+n) bildet als Nebenfruchtform (NFF) asexuell, nur mitotisch entstandene Verbreitungseinheiten, dikaryotische Uredosporen (n+n), die Sporengeneration [II]. Sie sind nur in der Lage, die gleiche Wirtsart (Weizen) zu besiedeln; damit erhöht sich der Infektionsdruck auf Weizen, zugleich für den Parasiten die Chance, den Wirt zu besiedeln, ist doch das Zeitfenster für mögliche Besiedlung limitiert.
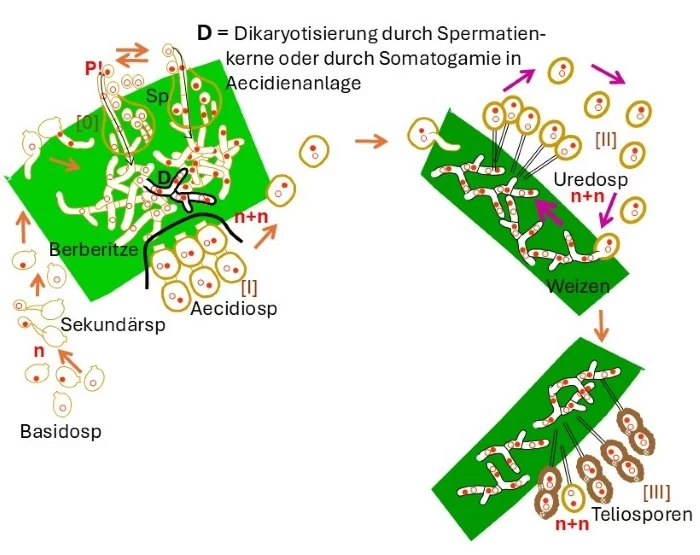
In den Uredosporenlagern (Uredien) werden später im Jahr erste Teliosporen (n+n), Sporengeneration [III] entstehen, bevor das Lager als reinsporige Telie nur noch dikaryotische, zweizellige Teliosporen bildet.
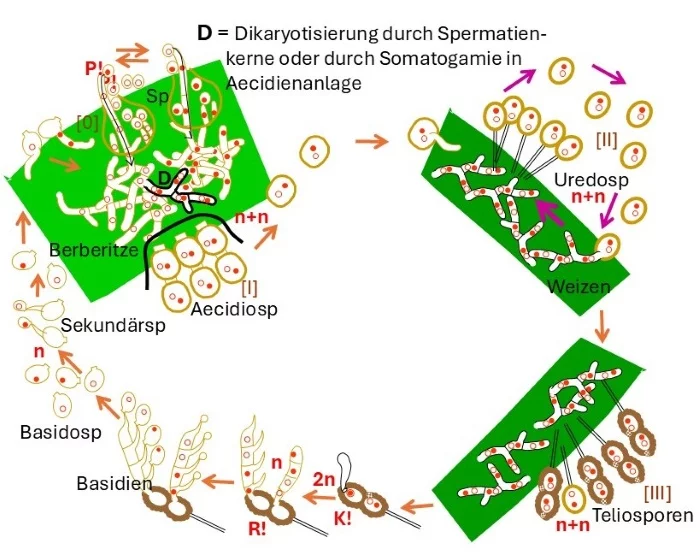
Diese Teliosporen überdauern an Ort, oder werden meistens vom Wind vertragen, die winterliche Jahreszeit und werden unter günstigen Bedingungen im Frühjahr in jeder der beiden Probasidien Karyogamie (K!) zum diploiden Kern (2n) vollziehen und durch den Keimporus die Metabasidien auswachen lassen, in der Meiose (R!) und Querwandbildung zur vierzelligen Basidie stattfinden. Danach formen sich die aktiv abspringenden, haploiden Basidiosporen (n), die Sekundärsporen bilden, die dann als Haploide wieder nur in der Lage sind, Berberitzen zu infizieren.
In einem Kreisschema zusammengefasst, zeigt sich eine haploide (n) Gametophytenphase mit haploidem Mycel und haploiden Spermogonien auf Berberitze (dünne durchgezogene, braune Linie als haploide Phase der Hauptfruchtform, HFF), in der die Dikaryotisierung (n+n) über Spermatisierung oder Somatogamie stattfindet, woran dikaryotische (n+n) Aecidiosporen entstehen, womit die dikaryotische (durchbrochene, dicke, braune Linie als Zeichen der dikaryotischen Phase der HFF) Sporophytenphase beginnt. Aecidiosporen benötigen einen Wirtswechsel zu Weizen, um dort auskeimen zu können. An Weizen erfolgt die asexuelle Vermehrung in Form von dikaryotischen (n+n) Uredosporen als Nebenfruchtform (NFF, violette durchbrochene Linie). Mit Teliosporen und deren Weiterentwicklung (K!R!) mit Metabasidien und Basidiosporen (n), beginnt wieder die gametophytische Phase. –
Hervorzuheben ist hier die Kopplung von Kernphase und Wirtswechsel: Der haploide (n) Gametophyt ist auf die Berberitze beschränkt, der dikaryotische (n+n) Sporophyt im Wesentlichen auf den Weizen; nur die aecidienbildenden dikaryotischen Hyphen parasitieren auch Berberitzen. Kompliziert wird der Lebenskreislauf durch das Vorkommen von drei dikaryotischen (n+n) Sporengenerationen (wobei eine dem Wirtswechsel dient (Aecidiosporen), eine der asexuellen Vermehrung (Uredosporen als „Konidien“), die dritte dem Abschluss der sexuellen Fortpflanzung (Teliosporen) und durch die beiden unterschiedlichen Möglichkeiten der Dikaryotisierung, durch Somatogamie oder durch Spermatisierung; Insekten (Spermatisierung) und Wind (Sporenausbreitung) sind als Vektoren in den Lebenskreislauf eingespannt.
Eigenem Vorlesungsmanuskript entnommen.
Eingestellt am 24. Oktober 2026
.
Pucciniales, Rostpilzartige
6 Einer Anzahl ist der Lebenszyklus viel zu lang (AP)
.
Wer sich in Abhängigkeit zweier Wirte begibt,
Wird so lange gut leben, wie beide nicht rar,
Keiner etwas gegen des Frechen Aggression unternimmt,
Und er selbst in der Lage, etwas zu ändern, wenn die Umwelt ihn prüft. –
.
Im Laufe undenklicher Zeiten entstanden
Immer neue Sippen von Pflanzen.
Auch sie wurden von Sporen bestreut.
Wer neues Angebot nutzt, geht mit der Zeit.
.
Dies betrifft jeglichen Teil des Lebenskreislaufs.
Farne waren als Dikaryontenwirte[1] bald passé,
Zwischen Nacktsamern, und später in Reinbeständen, zuhauf.
.
Klimaänderung, Besiedeln neuer extremer Regionen mit
Wenig Wärme und kurzen Zeiten des Lichts
Und Pflanzen, Blätter herausfordernd schützend,
Waren Stolpersteine der Roste Evolution.
.
Wer darauf reagiert, gar zurück sich zieht,
Auf einem der beiden Wirte verbleibt, den er lange schon kennt,
Oder anfällige Zeiten, sei es im Grün, auf dem Weg dorthin,
Bleibt erhalten, weil er sich anpasst im herausfordernden Spiel des Lebens:
Der vermehrt der Arten Bestand.
.
So hilft Dikaryontenwirte zu finden niemand mehr;
Vielmehr verbleiben Roste als Folge auf jenem Wirt,
Der zum Sex[9] den Ort ihnen gab.
.
Falls Aecidiosporen Dikaryontenwirte[13] in Massen belegen,
Ohnehin Vegetationsperioden recht kurz,
Dann reicht zur Arterhaltung die erste Sporengeneration[14] vollkommen aus.
.
Der Mikro-Zyklus schenkt sich Aecidio- und auch Uredosporen:
Was eigentlich als Aecidiospore war geplant!
.
Am knappsten hält es der Endo-Typ mit seinem Rostpilzleben[19]:
Er nimmt Aecidiosporen bereits in die Pflicht,
Für Basidien[20] mit Basidiosporen zu sorgen.
Er schlägt in arktischen Breiten am besten sich durch.
.
Arktische Roste verzichten oft vollkommen auf Sexualität,
Leben nur noch dikaryotisch[21].
Uredosporen übernehmen asexuell des Zyklus‘ Regie.
.
Freilich ist die Frage berechtigt:
Warum wird von Verlusten nur hier immer gesprochen?
Roste könnten doch mehrfach zum Makrozyklus[24] gekommen sein!
Zwei gute Argumente sprechen gegen den Einwand jedoch:
Sehr unwahrscheinlich ist es, so Kompliziertes mehrfach zu bilden,
Zum andern leben nahezu alle makrozyklisch-heterözischen[25] Arten
Auf ursprünglichen Wirten, beispielhaft Farnen, kommen
Außerdem mit einfachen, kaum differenzierten Teliosporen zurecht.
.
Fußnoten
[1] Dikaryontenwirt (Pucciniales): Hauptwirt, auf ihm erfolgt der Abschluss der sexuellen Fortpflanzung erfolgt
[2] Haplontenwirt (Pucciniales): Nebenwirt, auf ihm erfolgt der Beginn der sexuellen Fortpflanzung
[3] Angiospermen: Bedecktsamer, Magnoliatae (Spermatophytina – Spermatophyta s.str. – Aneurophytales – Progymnospermophytina – Spermatophyta s.l. –…)
[4] Basidiosporen: Von Basidiomycota, von Ständerpilzen, nach außen gebildete Meiosporen
[5] Bis wieder Basidiosporen entstehen
[6] Wirtswechsel: Im Zuge eines Entwicklungskreislaufes regelmäßiger Wechsel von einem Wirt zum anderen; oft mit Kernphasenwechsel gekoppelt
[7] Aecidiosporen, Aeciosporen (Pucciniales): Erste Sporengeneration (Sporengeneration I), die nach Dikaryotisierung durch Spermatisierung oder Somatogamie auf dem sog. Nebenwirt entsteht; dienen der Ausbreitung durch den Wind auf den Hauptwirt zur sexuellen Fortpflanzung und sind für den Transport leicht bräunlich gefärbt und mit auftriebserhöhenden Ornamenten versehen
[8] Brachytyp-Zyklus (Pucciniales): Lebenskreisreislauf unter Aecidiosporenverlust
[9] Geschlechtliche, sexuelle Fortpflanzung: Dafür sind drei Vorgänge miteinander gekoppelt, Meiose (abgekürzt mit R!), Plasmogamie (Zellen vereinen sich, abgekürzt mit P!) und Karyogamie (Kerne verschmelzen, abgekürzt mit K!), wobei P! und K!, mit Ausnahme bei Dikarya, unmittelbar aufeinander folgen. Bei Dikarya (Unbegeißelte Chitinpilze – Fungi – Opisthokonta – Eukarya) sind beide Vorgänge unterschiedlich lang (weit) voneinander getrennt. Da bei Animalia und Plantae P! und K! unmittelbar aufeinander folgen, werden beide Vorgänge häufig zu Befruchtung (B!) zusammengefasst
[10] Uredosporen (Pucciniales): Asexuell entstandene, dikaryotische Verbreitungseinheiten (Konidien), die als Nebenfruchtform der schnellen Vermehrung des Rostpilzes dient und nur auf den gleichen Wirten auskeimen kann, in denen die dikaryotische Phase, die Hauptfruchtform, gebildet werden kann; im Entwicklungskreislauf der Rostpilze als Sporengeneration II geführt
[11] Asexuelle Vermehrung: Rein mitotisch bedingte Vermehrung, daher Individuen genetisch identisch
[12] Opsistyp-Zyklus (Pucciniales): Lebenskreislauf unter Uredosporenverlust
[13] Hauptwirt (Pucciniales): Auf ihm erfolgt die sexuelle Fortpflanzung
[14] Aecidiosporen
[15] Teliosporen: Dickwandige Dauersporen als Verbreitungseinheit, die zumindest anfangs ein Dikaryon enthält; im Entwicklungskreislauf der Pucciniales als Sporengeneration III geführt
[16] Somatogamie (Basidiomycota): Gewöhnliche Körperzellen, keine besonders gestalteten Zellen, keine Gametangien, verschmelzen, um zwei zueinander passende, kompatible Kerne für sexuelle Fortpflanzung zusammenzubringen
[17] Mikrotyp-Zyklus (Pucciniales): Lebenskreislauf unter Uredo- und Aecidiosporenverlust
[18] Nebenwirt, Haplontenwirt (Pucciniales): Auf ihm erfolgt der Beginn der sexuellen Fortpflanzung
[19] Endotyp-Zyklus (Pucciniales): Lebenskreislauf unter Uredo- und Teliosporenverlust
[20] Basidien: Ständer, auf denen sexuell gebildete Sporen entstehen
[21] Dikaryon, dikaryotisch: Zwei konträrgeschlechtliche haploide (n) Kerne [werden als (+)- und (–)-Kerne oder als α- und β-Kerne bezeichnet; unterscheiden sich ihre Behälter in Größe oder die Dikaryen bildenden Kerne in der Wanderungsrichtung, kann auch von männlichen (wandern zu ihren Partnern, die stationär bleiben) und weiblichen Kernen gesprochen werden], bilden funktionell eine Einheit (n+n), ohne miteinander zum diploiden Kern (2n) verschmolzen (K!) zu sein; sie teilen sich mitotisch synchron, um damit zwei Dikaryen zu bilden, sich zu verdoppeln. Im Entwicklungskreislauf erfolgt zwar zunächst die Plasmogamie (P!), doch die Karyogamie (K!) zum diploiden (2n) Kern wird erst kurz vor der Meiose (R!) vollzogen. Man spricht hier auch von verzögerter Karyogamie. Dikaryen treten bei Taphrinomycotina, Pezizomycotina, Pucciniomycotina, Ustilaginomycotina und Agaricomycotina auf
[22] Spermogonien, Pycniden, (Fungi): Krugförmige Behälter für Konidien oder Spermatien
Spezies: Art, Arten
[23] Spermatien: Unbegeißelte männliche Fortpflanzungszellen (Gameten, bei Rhodophyta, bei manchen Pezizomycotina und Pucciniomycetes)
[24] Makrozyklus (Pucciniales): Ausführlicher, vollständiger Lebenskreislauf mit allen Sporengenerationen, Spermatien (0), Aecidiosporen (I), Uredosporen (II), Teliosporen (III), Basidiosporen
[25] Heterözisch: Im Lebenszyklus werden zwei verschiedenartige Wirte benötigt
Eingestellt am 24. Oktober 2026
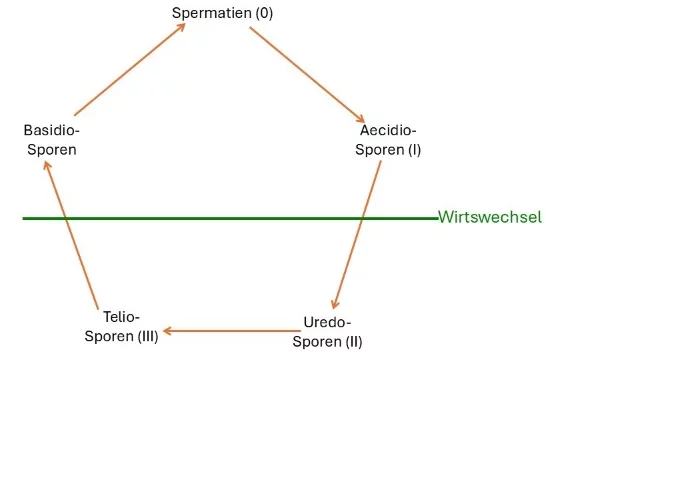
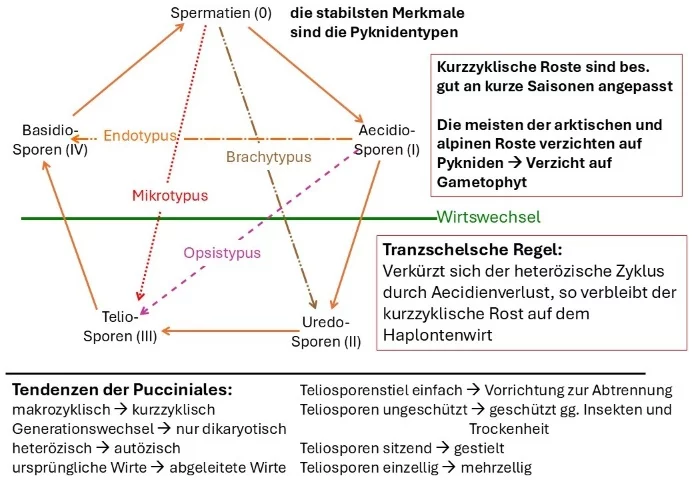
Entwicklungszyklustypen der Pucciniales (ppt; Reinhard Agerer)
Makrozyklus: Ausführlicher, vollständiger Entwicklungszyklus mit allen Sporengenerationen, Spermatien (0), Aecidiosporen (I), Uredosporen (II), Teliosporen (III), Basidiosporen
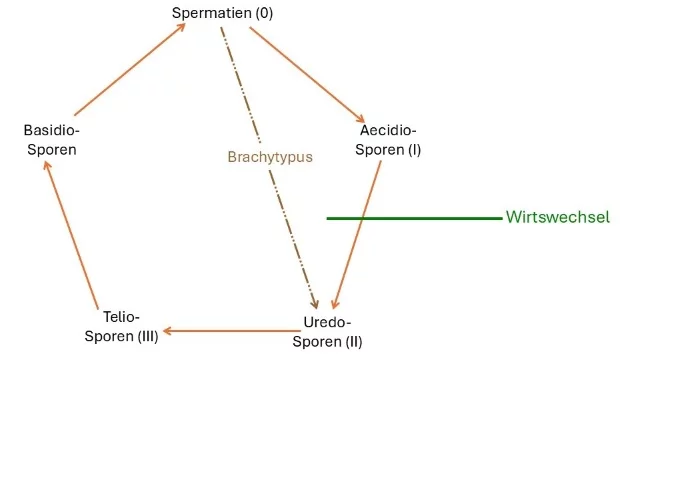
Brachytyp: Entwicklungszyklus unter Aecidiosporenverlust: kein Wirtswechsel
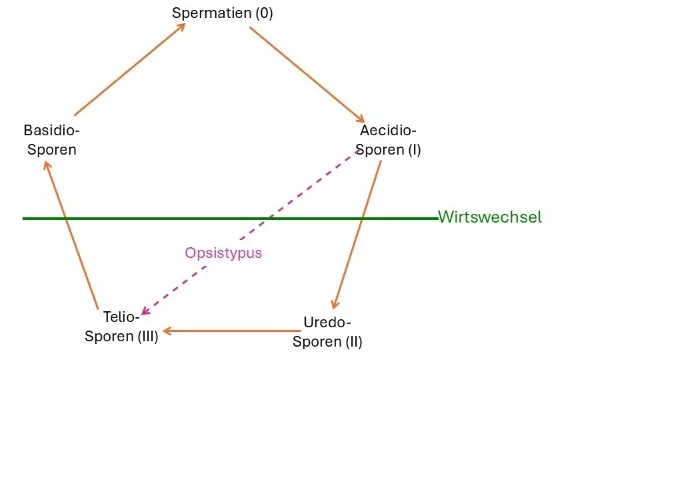
Opsistyp: Entwicklungszyklus unter Uredosporenverlust
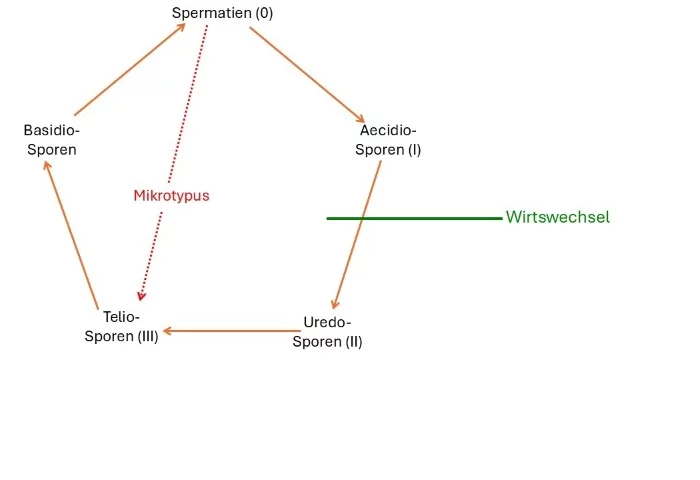
Mikrotyp: Entwicklungszyklus unter Uredo- und Aecidiosporenverlust; kein Wirtswechsel
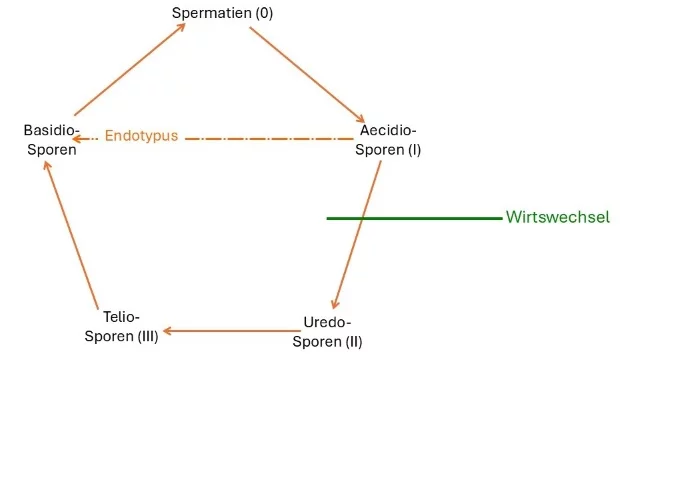
Endotyp: Entwicklungszyklus unter Uredo- und Teliosporenverlust; kein Wirtswechsel
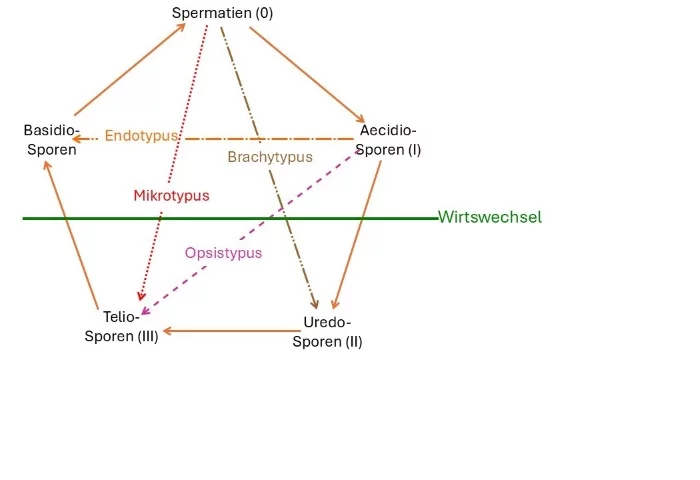
Entwicklungszyklustypen der Pucciniales (ppt; Reinhard Agerer)
Alle Typen zusammen mit Tendenzen: Erklärungen im Text
Aus eigenem Vorlesungsmanuskript
Eingestellt am 24. Oktober 2026
.
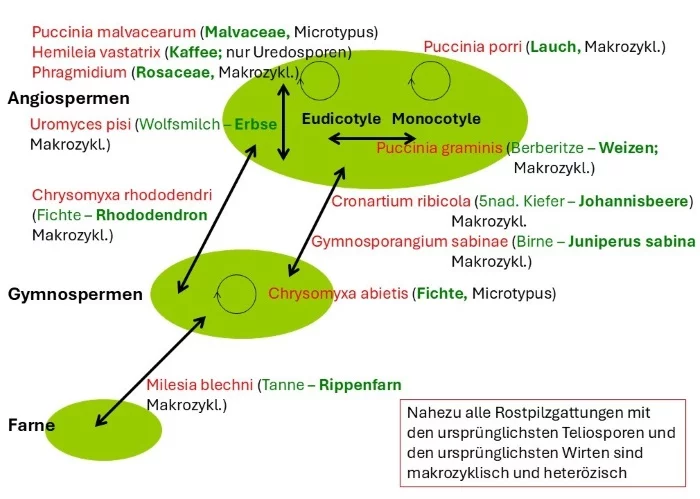
Wirtswechsel von Rostpilzen und Evolutionshöhe der Wirte (Farne – Gymnospermen – Angiospermen) mit Beispielen (ppt; Reinhard Agerer)
Doppelpfeile: Wirtswechsel zwischen Farnen und Gymnospermen; zwischen Gymnospermen und Angiospermen; zwischen Eudicotylen und Monocotylen; zwischen unterschiedlich hoch entwickelten Sippen der Eudicotylen. – Geschlossene Kreise mit Pfeil: Autözisch, kein Wirtswechsel; Sporengenerationen auf ein und demselben Wirt. – Fett geschrieben: Dikaryontenwirt; normal geschrieben: Haplontenwirt. – Zyklustyp: angegeben.
Eigenem Vorlesungsmanuskript entnommen
Eingestellt am 24. Oktober 2026
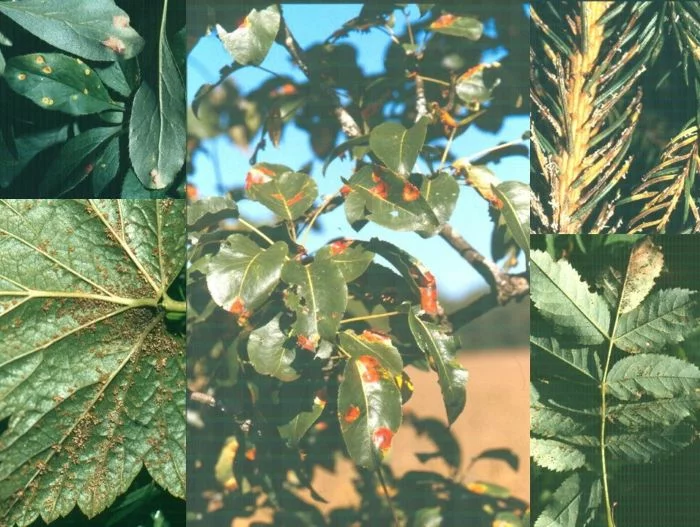
Einige bekanntere Rostpilzbeispiele (Originale; Reinhard Agerer)
Links oben: Puccinia graminis (Schwarzrost des Getreides) auf Berberitze: Spermogonien [0] in orangen Flecken der Blattoberseite (Mitte links), Aecidien [I] in gelblichem, erhabenem Fleck auf Blattunterseite (rechts). – [Uredo- und Telienwirt: Weizen]
Links unten: Cronartium ribicola (Säulenrost der Schwarzen Johannisbeere) auf Schwarzer Johannisbeere auf Blattunterseite: Uredien (bräunliche kleine Flecken) [II] und Telien (gekrümmte Säulchen) [III]. – [Spermogonien- und Aecidienwirt: 5nadelige Kiefern]
Mitte: Gymnosporangium sabinae (Birnengitterrost auf Birnblättern): Spermogonien [0] in orangen Flecken der Blattoberseite [Uredo- und Telienwirt: Juniperus sabinae]
Rechts oben: Chrysomyxa rhododendri (Fichtennadelblasenrost): Spermogonien [0] (nicht erkennbar) und Aecidien [I] als weißliche Röhren. – [Uredo- und Telienwirt: Behaarte oder Rostblättrige Alpenrose]
Rechts unten: Phragmidium sp. (Rosenrost): mit Spermogonien [0] (nicht erkennbar), Uredien [I] (nicht erkennbar) und Telien [III] (schwarze Punkte). – [Kein Wirtswechsel; alle Generationen auf demselben Wirt]
Eigenem Vorlesungsmanuskript entnommen
Eingestellt am 24. Oktober 2026
.
Pucciniales, Rostpilzartige
7 Der Sporenlager Variationen (AP)
.
Der Rostpilze Spermogonien[1] wählen, ihre Entwicklung zu sichern,
Verschiedene Arten der Lage, des Schutzes, je nach Sippe[2] am Blatt:
.
Den einen genügt, nachdem sie Epidermen[3] durchbrochen,
Nicht aber zerstörten oder verdauten, der Cuticula[4] zeitweiser Schutz,
Heben sie an, reißen sie auf,
Spermatien[5] aus den Hyphen zu knospen;
Aggressive zersetzen, Raum für spermatogene Hyphen[6] zu schaffen,
Auch Epidermen, bleiben so lang unterm Cuticuladach.
.
Andere graben sich tiefer ins Blatt,
Nehmen Epidermen als schützende Hüllen dazu,
Veranlassen gar noch den Wirt, eine weitere Schicht
– Er kann nicht anders – zu formen.
.
Fortschrittlichen scheint diese Weise zu wenig schützend vor trocknenden Winden:
Versenken sie tiefer noch ins Gewebe:
Werden zum bauchigen Krug mit schützendem Hals,
Der Spermatien Mengen hindurchzudrücken.
.
Viele verlassen sich nicht auf der Pflanze erzwungene Hilfe,
Bedecken am Rand, ob flach am Blatt oder versteckt,
Spermogonien mit dünner Wand aus dichtschließenden Hyphen[7]:
Diese geben, wenn Umstände günstig, Spermatien frei. –
.
Aecidien[8] mit Deckel, aus der Sporenketten Endzellen entstanden,
– Seitliche Reihen blieben schon anfangs steril –
Gelten als der Roste weitest verbreitete Form zum Schutz der Entwicklung
Und zum Öffnen des Bechers,
Wenn er platzend auch die Epidermis entfernt;
Nicht wenige aber sparen sich den Aufwand,
Lassen Sporenketten an der schützenden Blatthülle rütteln bis sie zerfetzt
Und Aecidiosporen[9], sich reckend, dem Lager entkommen. –
.
Ursprünglicher Wirte Uredolager[10] unterscheiden sich strukturell
Noch kaum von der Weise, wie Aecidien sich bilden:
Füllen mit Ketten aus Sporen und Zwischenzellen[11] das Lager, formen ein Dach,
Verzichten recht bald jedoch auf Eigenbedeckung,
Brechen reif als Pustel epidermisbrechend hervor.
Als letzter Schrei sitzen sie hoch oben an Stielchen,
Warten bis jemand sie stößt
Und mitsamt dem Stielchen dem Lager entfallen.
.
Der Sporen Stielchen legen Zwischenzellen den Grund,
So, wie Aecidiosporen und Uredosporen[12] altmodischer Art
Voneinander sich lösen;
Doch als Stielchen verschleimen sie nicht,
Bleiben aufrecht und fest,
Warten auf Rütteln durch Tiere und Wind. –
.
Teliolager[13] unterscheiden sich kaum von
Uredien modernster Version:
Ihre Sporen steh‘n benachbart oft schon gemeinsamen im Bett.
Teliosporen[14] aber unterliegen gehöriger Evolution:
.
Legen Teliosporen auf Ruhepausen kaum gesteigerten Wert,
Dann verdicken und bräunen sich Wände kaum,
Keimen im gleichen Jahr noch, sobald die Gelegenheit günstig dafür[15]:
Sie gelten, weil oft auf Farne oder ursprüngliche Wirte[16] spezialisiert,
Als urzeitlicher Reste Spiegel im Jetzt.
Doch auch Moderne kennen den Dreh:
Einige nehmen für typische Teliosporen sich fast keine Zeit;
Dickere Wände brauchen sie nicht, wandeln sich gleich zu Basidien[17] um.
.
Form und Ort der Teliosporen Ontogenie
Zeigen oft Ursprünglichkeit an:
Besonders liegen sie einzeln oder tetradenartig im Blatt,
Auch wenn sie ungestielt zu Ketten vereint.
.
Gelingt es, auf Stielchen nicht nur mit einer Zelle zu gründen,
Sondern mit zwei, vielleicht mit acht, zehn oder mehr,
In Reihe oder als vielzelliges Blättchen,
Wird, Anzahl der Teliosporenzellen mit vier multipliziert[18],
Des Rostes Erfolg, Wirte zu infizieren, potenziert!
Nehmen Insekten sie, getäuscht, vermeintlich als Pollen,
Wird die Ausbreitung geschickt dirigiert!
Kaum ein Päckchen würde verloren sich irgendwo finden.
.
Die ein oder andere Art geht gar so weit,
Ihre Stielchen mit Häkchen und Ästchen zu schmücken:
Irgendwo sollen sie, vielleicht am Insektenbein[19],
Sich für die Reise verkrallen, um nicht vor der Landung des Trägers zu fallen.
.
Fußnoten
[1] Spermogonien, Pycniden (Fungi): Oft krugförmige Behälter für Konidien oder Spermatien
[2] Sippe: Unter Sippe wird eine oft nicht genauer genannte Verwandtschaft verstanden, im Gegensatz zu Gruppe, die lediglich eine Ansammlung nicht näher verwandter Organismen bezeichnen will
[3] Epidermis (Plantae): Äußerste, einzelllagige Schicht von Blättern, Stengeln und Blütenorganen; bei Wurzeln wird sie Rhizodermis genannt
[4] Cuticula (Plantae): Wachsartiger Überzug, der nur Epidermiszellen von Blättern und jungen Sprossen und anderen der Luft ausgesetzten Geweben ohne Periderm überzieht. Durch ihre hydrophoben Eigenschaften verringern sich die Wasserverluste der Pflanze
[5] Spermatien: Unbegeißelte männliche Fortpflanzungszellen (Gameten, bei Rhodophyta, bei manchen Pezizomycotina und Pucciniomycetes)
[6] Spermatiogene Hyphen: Hyphen, deren Endzellen Spermatien bilden
[7] Periphysen (Pucciniales): Spermogonien-, Aecidien-, Uredien- und telienumgebende sterile Hyphen
[8] Aecidie: Lager (Fruchtkörper) der Aecidiosporen
[9] Aecidiosporen, Aeciosporen (Pucciniales): Erste Sporengeneration (Sporengeneration I), die nach Dikaryotisierung durch Spermatisierung oder Somatogamie auf dem sog. Nebenwirt entsteht; dienen der Ausbreitung durch den Wind auf den Hauptwirt zur sexuellen Fortpflanzung und sind für den Transport leicht bräunlich gefärbt und mit auftriebserhöhenden Ornamenten versehen
[10] Uredolager, Uredien: Lagerförmig zusammengestellte (Fruchtkörper) Uredosporen
[11] Zwischenzellen (Pucciniales): In Ketten gebildete, ungestielte Sporen (Aecidiosporen) besitzen jeweils eine sterile Zwischenzelle, die zum Separieren der Sporen verschleimt; eine ähnliche, aber jeweils nur einmal gebildete, da Sporen nicht in Kette entstehen (Uredosporen, Teliosporen), steril bleibende kleinere Zelle, führt zum Stiel der Spore
[12] Uredosporen (Pucciniales): Asexuell entstandene, dikaryotische Verbreitungseinheiten (Konidien), die als Nebenfruchtform der schnellen Vermehrung des Rostpilzes dient und nur auf den gleichen Wirten auskeimen kann, in denen die dikaryotische Phase, die Hauptfruchtform, gebildet werden kann; im Entwicklungskreislauf der Rostpilze als Sporengeneration II geführt
[13] Teliosporenlager, Telien: Lagerförmig zusammengestellte (Fruchtkörper) Teliosporen
[14] Teliosporen: Dickwandige Dauersporen als Verbreitungseinheit, die zumindest anfangs ein Dikaryon enthalten; im Entwicklungskreislauf der Pucciniales als Sporengeneration III geführt
[15] Leptotyp (Pucciniales): Als Leptotyp werden Rostpilze bezeichnet, deren Teliosporen ohne Ruhepause Metabasidien bilden und dementsprechend keine betonten, zur Überdauerung geeigneten Zellwände besitzen
[16] Gemeint sind hier Wirte, die mit ursprünglichen Merkmalen andeuten, dass sie evolutiv noch fortschrittlich sind: z. B. gelten Ranunculaceae (Hahnenfußgewächse) als ursprünglicher als Asteraceae (Asterngewächse)
[17] Interne Keimung (Pucciniales): Teliosporen keimen hier nicht mit Metabasidien, sondern sie selbst werden zu vierzelligen Basidien
[18] Je Teliosporenzelle entstehen vierzellige Basidien mit je einer Basidiospore
[19] Insekten: Hexapoda (Tetraconata – Mandibulata – Arthropoda – Panarthropoda – Ecdysozoa –…)
Eingestellt am 24. Oktober 2026
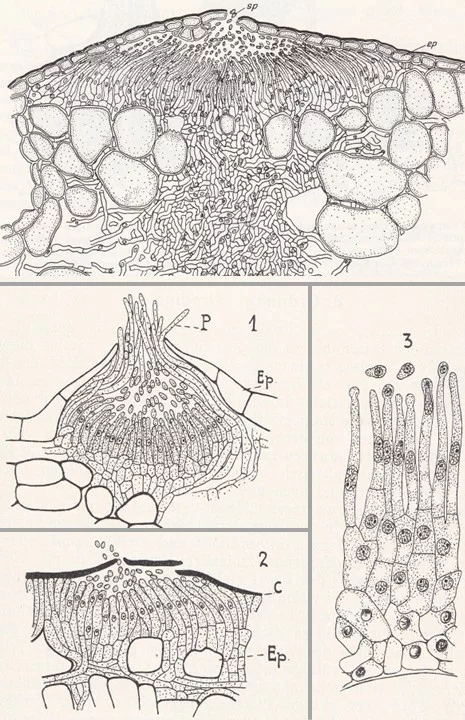
Pycnidenformen (Spermogonien)
Oben: „Flaches, acervulusartiges Spermogonium eines Farnrostes, Hyalopsora aspidiotus, auf einer Nadel von Abies balsamea. – ep Epidermis der Nadeloberseite; sp Spermatien.“
Aus Gäumann (1964), Abb. 548, Seite 441; Lizenz: angefragt, unverändert
Unten: „1 Gymnosporangium clavariaeforme. Schnitt durch eine Pyknidie auf einem Crataegusblatt. 2 Phragmidium violaceum. Pyknidie auf Rubus mit gesprengter Cuticula. 3 Cronartium ribicola. Partie aus einer Pyknidie. – P Paraphysen; Ep Epidermis; C Cuticula.
Aus Gäumann (1926), Fig. 277, Seite 422; Lizenz: gemeinfrei, unverändert
Eingestellt am 24. Oktober 2026
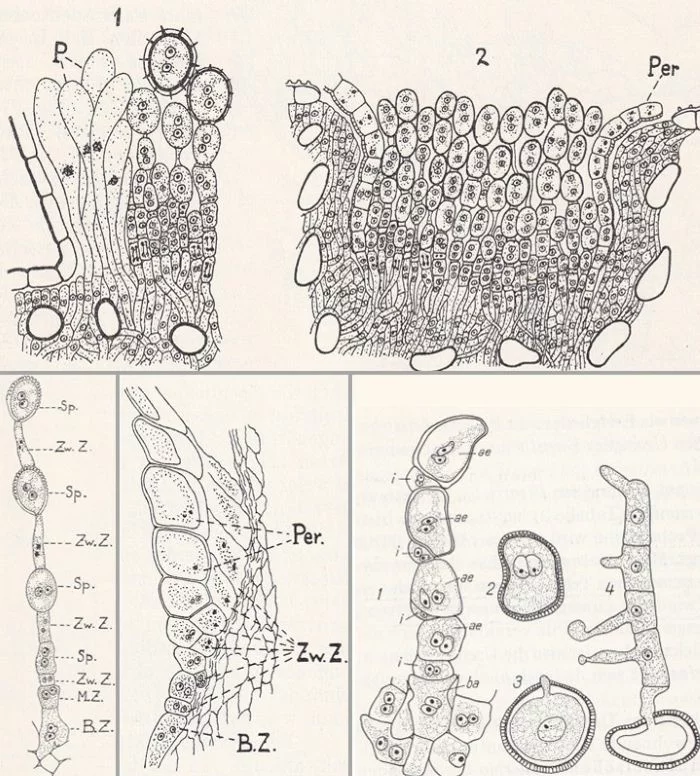
Aecidienmerkmale
Oben links: „Typen der Aecidien. 1 Caeomatypus. P Paraphysen (Phragmidium rubi)“
Aus Gäumann (1926), Fig. 278, Seite 423; Lizenz: gemeinfrei, unverändert
Oben rechts: „2 Bechertypus. Per Perdie (Uromyces erythronii)“
Aus Gäumann (1926), Fig. 278, Seite 423; Lizenz: gemeinfrei, unverändert
Unten links: „Cronartium ribicola. Längsschnitt durch eine Aecidiosporenkette. Sp. Aecidiosporen; Zw.Z. Zwischenzellen; M.Z. ungeteilte Aecidiosporenmutterzelle; B.Z. Basalzelle.“
Aus Gäumann (1926), Fig. 281, Seite 426; Lizenz: gemeinfrei, unverändert
Unten Mitte: „Puccinia graminis. Randpartie eines Aecidiums. Längsdurchschnitt durch die Basalzelle B.Z. und den untern Teil der Peridie Per. mit den Zwischenzellen Zw.Z.“
Aus Gäumann (1926), Fig. 283, Seite 429; Lizenz: gemeinfrei, unverändert
Unten rechts: „Entwicklung des Endophyllum sempervivi auf Sempervivum tectorum. 1 Aecidiosporenkette mit Basalzelle ba, Aecidiosporen ae und Zwischenzellen i. 2 Beginn der Karyogamie in der Aecidiospore. 3 Eine diploide Aecidiospore beginnt zu keimen. 4 Aecidiospore hat mit einer Basidie gekeimt.“
Aus Gäumann (1964), Abb. 570, Seite 462; Lizenz, angefragt, unverändert
Eingestellt am 24. Oktober 2026
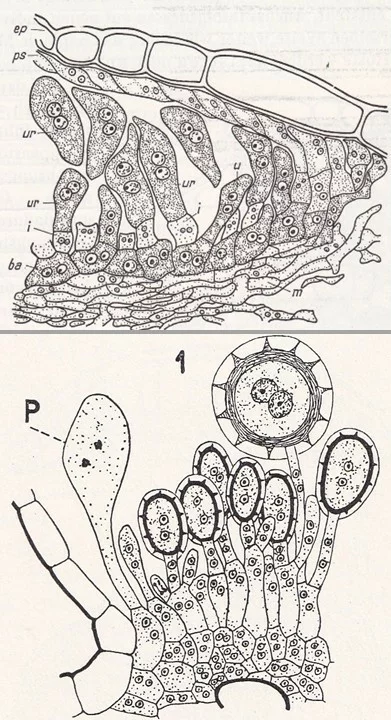
Uredienformen
Oben: „Milesia polypodophila. Schnitt durch den Rand eines Uredolagers auf Polypodium virginianum. ep Epidermis der Blattunterseite; ps vergängliche Pseudoperidie; ur Uredosporen; i Zwischenzellen; ba Basalzelle; u Uredosporenmutterzelle; m basales Hyphengeflecht“
Aus Gäumann (1964), Abb. 464, Seite 449; Lizenz: angefragt; unverändert
Unten: „1 Phragmidium rubi. Randpartie aus einem Uredolager. P Paraphyse.“
Aus Gäumann (1926), Fig. 285, Seite 432; Lizenz: gemeinfrei; unverändert
Eingestellt am 24. Oktober 2026
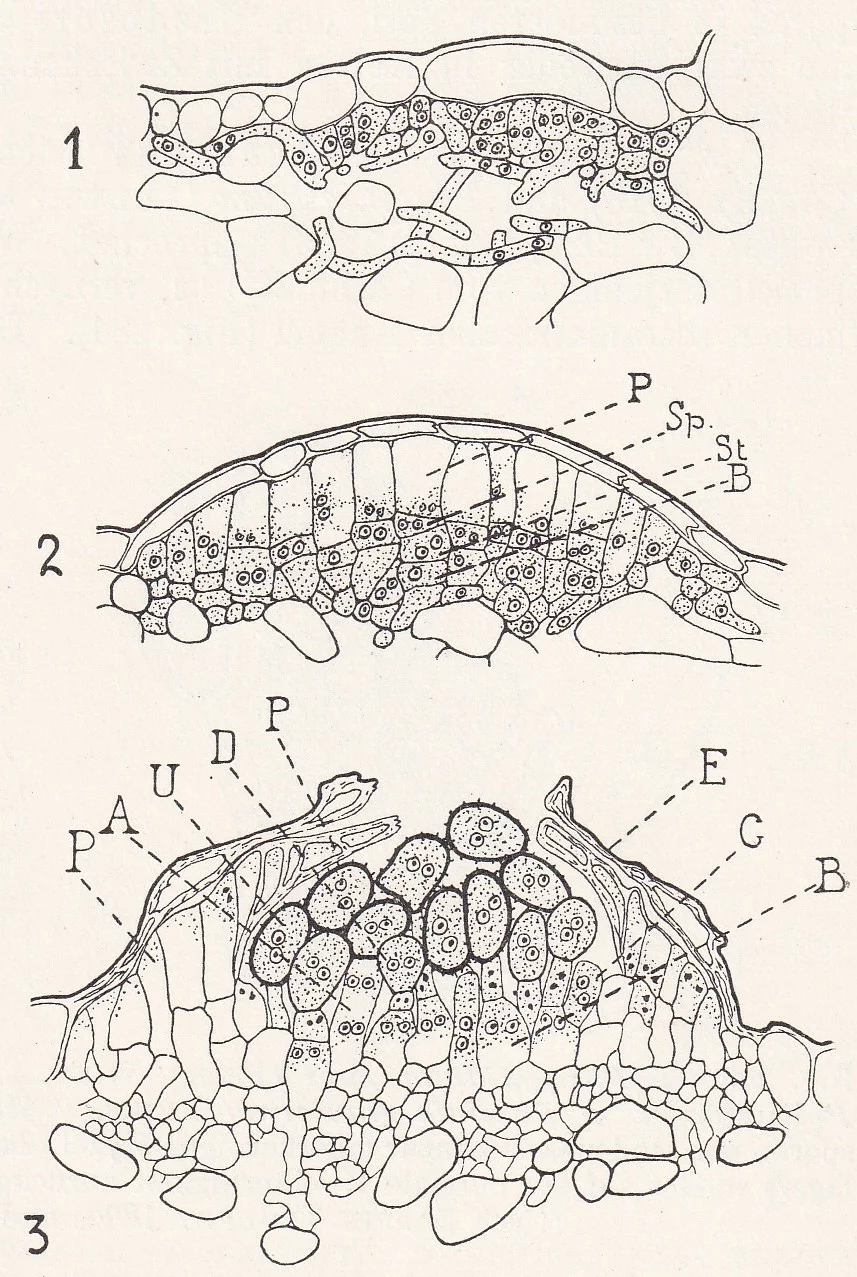
Entwicklung eines Uredolagers, Cronartium ribicola
„1 Junge Anlage eines Lagers in der Atemhöhle einer Spaltöffnung. 2 Älteres Stadium. 3 Reifes Lager. P Peridienzelle; Sp junge Uredospore; St Stielzelle; B Basalzelle; A vierkernige Basalzelle kurz vor der Abschnürung der Uredospore; C sekundäre Uredosporenmutterzelle, die soeben von der Basalzelle abgeschnürt worden ist; D die junge Sporenmutterzelle hat sich in eine Spore und eine Stielzelle geteilt; U reife Uredospore; E zerknitterte Epidermiszelle.“
Aus Gäumann (1926), Fig. 284, Seite 431; Lizenz: gemeinfrei; unverändert
Eingestellt am 24. Oktober 2026
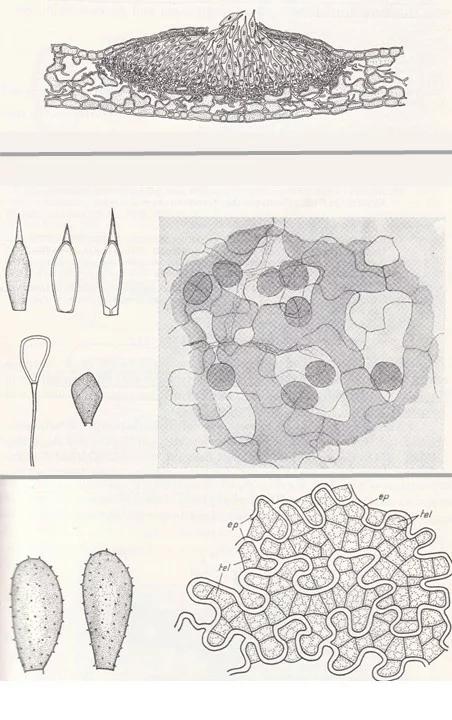
Ursprüngliche Telien (und Uredien)
Oben: „Uredinopsis phegopteridis. Schnitt durch ein Uredolager auf der Unterseite eines Wedels von Gymnocarpium dryopteris (syn. Phegopteris dryopteris). Die Uredosporen werden in Schnüren ausgepresst.“
Aus Gäumann (1964), Abb. 573, Seite 465; Lizenz: angefragt; unverändert
Mitte links: „Uredinopsis filicina auf Phegopteris connectilis (syn: Dryopteris phegopteris). Oben: Uredosporen, die einen spitz auslaufenden kernlosen Schnabel tragen. Unten: Amphisporen“
Aus Gäumann (1964), Abb. 574, Seite 465; Lizenz: angefragt; unverändert
Mitte rechts: „Uredinopsis filicina. Dünnwandige, farblose, einzellige oder septierte Teliosporen, die zerstreut im Mesophyll eines Wedels von Phegopteris connectilis liegen.
Aus Gäumann (1964), Abb. 575, Seite 465; Lizenz: angefragt; unverändert
Unten links: „Milesia scolopendri auf Phyllitis scolopendrium. Uredosporen.“
Aus Gäumann (1964), Abb. 576, Seite 467; Lizenz: angefragt; unverändert
Unten rechts: „Milesia vogesiaca, Kruste von dünnwandigen, septierten Teliosporen in den Epidermiszellen eines Polystichum. Tel Teliosporen; ep Wände der Epidermiszellen.“
Aus Gäumann (1964), Abb. 577, Seite 467; Lizenz: angefragt; unverändert
Eingestellt am 24. Oktober 2026
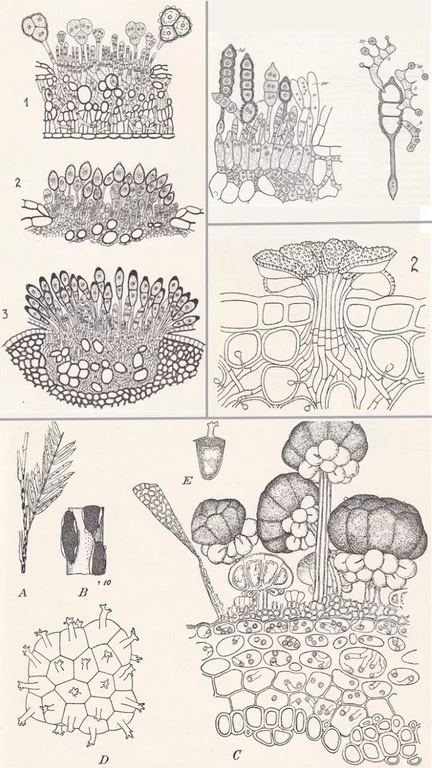
Einige fortschrittliche Teliosporen
Links oben: “Teliosporenlager von 1 Triphragmium ulmariae. 2 Uromyces striatus. 3 Puccinia graminis.“
Aus Gäumann (1926), Fig. 295, Seite 443; Lizenz: gemeinfrei; unverändert
Rechts oben links: „Phragmidium bulbosum. Schnitt durch ein Teliolager mit Teliosporen in allen Entwicklungsstadien. Per Periphysen; ur Uredospore; tel Reife Teliospore.“
Aus Gäumann (1964), Abb. 565, Seite 452; Lizenz: angefragt; unverändert
Rechts oben rechts: „Phragmidium bulbosum. Keimende Teliospore. B Metabasidie; sp Basidiosporen.“
Aus Gäumann (1964), Abb. 566, Seite 452; Lizenz: angefragt; unverändert
Mitte rechts: „2 Hemileia vastatrix. Teliosporenbüschel.“
Aus Gäumann (1926), Fig. 297,2, Seite 444; Lizenz: gemeinfrei; unverändert
Unten: „A – C Ravenelia cassiicola. A Ein vom Pilz befallenes Zweigstück von Cassia nictitans mit Teliosporenlagern und Uredosporenlagern auf den Blättern. B Ein Stück des Stengels vergrößert. Die Teliosporenköpfchen sind schon bei schwacher Vergrößerung einzeln sichtbar. C Schnitt durch die Randpartie eines stengelständigen Teliosporenlagers. Die Cuticula ist abgesprengt und erscheint durch anheftende Hyphenreste gefeldert. Das Mycel ist in den Rindenzellen sichtbar. Das Sporenlager zeigt reife und jugendliche Köpfchen, eines der letzteren im Durchschnitt. D Ein Köpfchen von Ravenelia appendiculata von oben gesehen. E eine isolierte Einzelspore derselben in der Seitenansicht.“
Aus Gäumann (1926), Fig. 298, Seite 445; Lizenz: gemeinfrei; unverändert
Eingestellt am 24. Oktober 2026
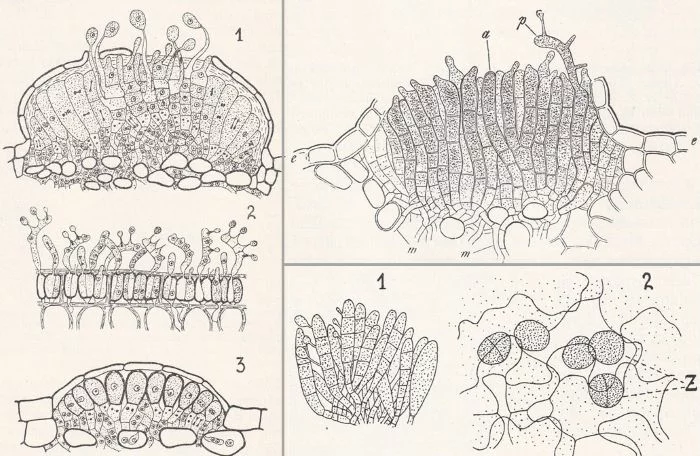
Teliosporen als Leptoformen
Links: „1 Coleosporium sonchi. Basidienlager. 2 Thecopsora areolata. Teliosporenlager. 3 Melampsora helioscopiae. Teliosporenlager.”
Aus Gäumann (1926), Fig. 288, Seite 437; Lizenz: gemeinfrei; unverändert
Rechts oben: „Chrysomyxa rhododendri. Teliosporenlager. a Teliosporenkette: p Basidie; e Epidermis der Wirtspflanze; m Mycel.“
Aus Gäumann (1926), Fig. 289, Seite 438; Lizenz: gemeinfrei; unverändert
Rechts unten: „1 Goplana mirabilis. Basidienlager. 2 Uredinopsis filicina. Z Teliosporen im Schwammgewebe eines Blatts.“
Aus Gäumann (1926), Fig. 288, Seite 437; Lizenz: gemeinfrei; unverändert
Eingestellt am 24. Oktober 2026
.
Pucciniales, Rostpilzartige
8 Der Morphologen Problem (AP)
.
Lange Zeit kämpften Experten mit der Rostpilze Fülle an
Wussten den vielen Variablen nicht Herr zu werden,
Denn weitere Merkmale standen noch kaum zur Verfügung;
Und Spermogonien[5] blieben früher zumeist unentdeckt.
.
Ein Durchbruch schien erst möglich als Forscher gezielt nach
Spermogonien suchten, sie analysierten und dachten,
Organe mit sexueller Beziehung seien – Insekten[6] standen dafür wohl Pate –
Für die Entwicklung von Verwandtschaftssystemen besser geeignet.
Versuchten, primitive von eher modernen zu trennen,
Ordnete von Familie zu Familie Gattungen um.
.
Auf wackligen Beinen nur stand diese Vorgehensweise.
Arten, zu Familien provisorisch vereint, blieben,
Bis DNA-Untersuchungen einstweilig Klarheit verschafften,
Ohne genauere Zuordnung irgendwo liegen.
.
Viele bleiben auch heute noch ohne rechten Verwandtschaftsbezug.
Niemand weiß, zu welcher Familie sie letztlich gehören.
Nur eines brachten Basensequenzanalysen recht deutlich hervor:
In drei Unterordnungen lassen Pucciniales sich teilen,
Die wir, in Ursprügliche, Modernere, Modernste gruppiert,
In dieser Reihe anhand bekannterer Arten besprechen.
.
Fußnoten
[1] Teliosporen: Dickwandige Dauersporen als Verbreitungseinheit, die zumindest anfangs ein Dikaryon enthalten; im Entwicklungskreislauf der Pucciniales als Sporengeneration III geführt
[2] Uredosporen (Pucciniales): Asexuell entstandene, dikaryotische Verbreitungseinheiten (Konidien), die als Nebenfruchtform der schnellen Vermehrung des Rostpilzes dient und nur auf den gleichen Wirten auskeimen kann, in denen die dikaryotische Phase, die Hauptfruchtform, gebildet werden kann; im Entwicklungskreislauf der Rostpilze als Sporengeneration II geführt
[3] Aecidie: Lager (Fruchtkörper) der Aecidiosporen
[4] Aecidiosporen, Aeciosporen (Pucciniales): Erste Sporengeneration (Sporengeneration I), die nach Dikaryotisierung durch Spermatisierung oder Somatogamie auf dem sog. Nebenwirt entsteht; dienen der Ausbreitung durch den Wind auf den Hauptwirt zur sexuellen Fortpflanzung und sind für den Transport leicht bräunlich gefärbt und mit auftriebserhöhenden Ornamenten versehen
[5] Spermogonien, Pycniden, (Fungi): Oft krugförmige Behälter für Konidien oder Spermatien
[6] Insekten: Hexapoda (Tetraconata – Mandibulata – Arthropoda – Panarthropoda – Ecdysozoa –…)
Eingestellt am 24. Oktober 2026
.
Fortsetzung Oktober 2027